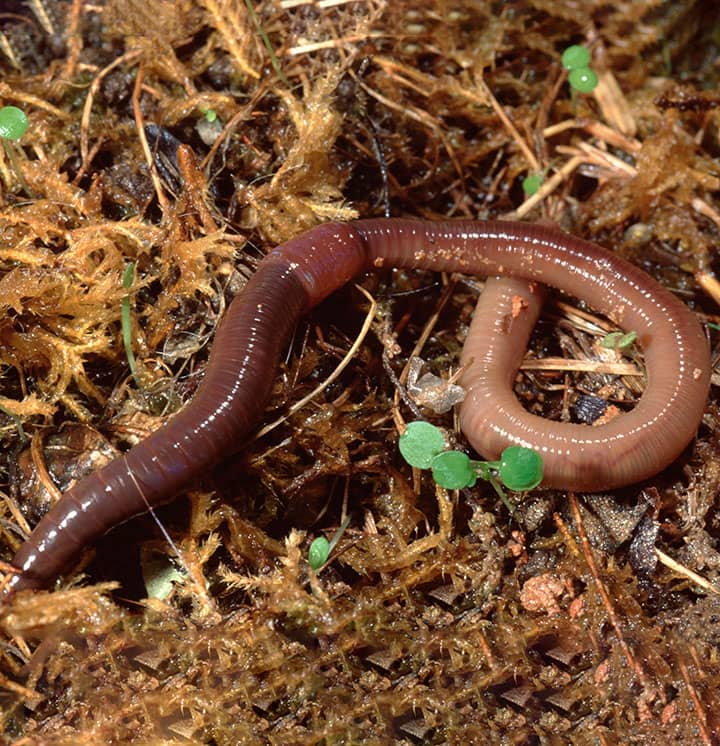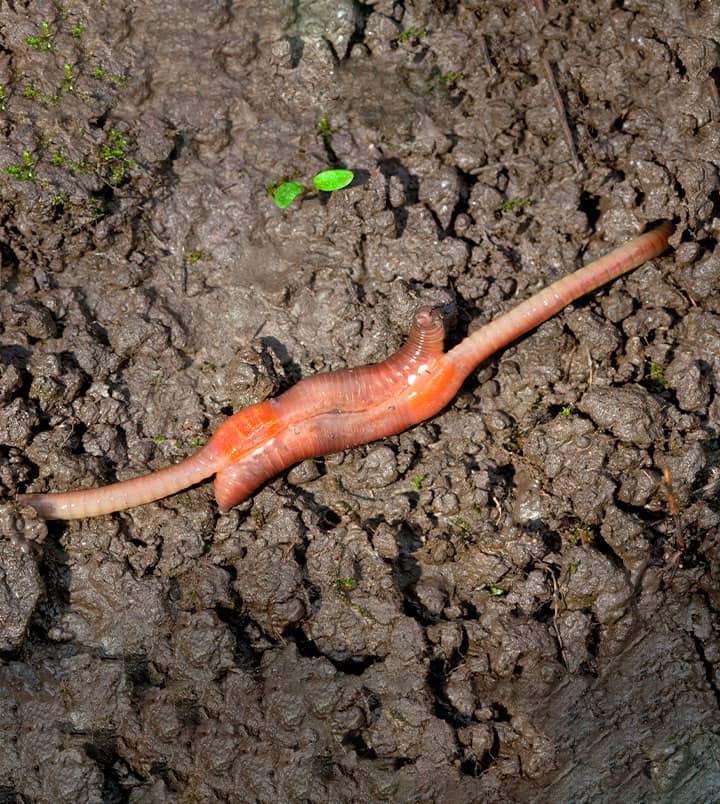
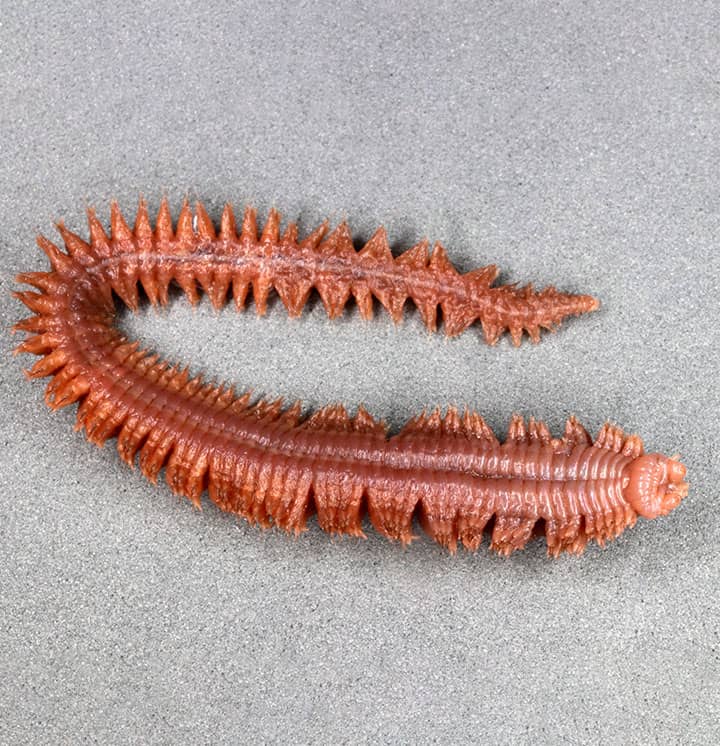
Nereis (poliqueta homônomo errante).
Principais características morfofuncionais da biologia e da classificação dos filos Annelida e Mollusca, e as relações filogenéticas com outros metazoários e dentro de cada filo.
Conhecer as características e a evolução de importantes grupos de metazoários, como anelídeos e moluscos, é essencial para a formação de um biólogo, seja um profissional que deseja atuar na área de licenciatura ou um bacharel, pois a aplicação dos conhecimentos zoológicos é vasta em múltiplos campos, como na agronomia, economia, medicina, lazer e até mesmo na tecnologia e na cultura.
Antes de iniciar seu estudo, tenha em mãos um dicionário de termos e conceitos básicos da sistemática filogenética.
Identificar características evolutivas comuns a Annelida e Mollusca
Distinguir as características morfofuncionais e os padrões evolutivos do filo Annelida
Distinguir as características morfofuncionais e os padrões evolutivos do filo Mollusca
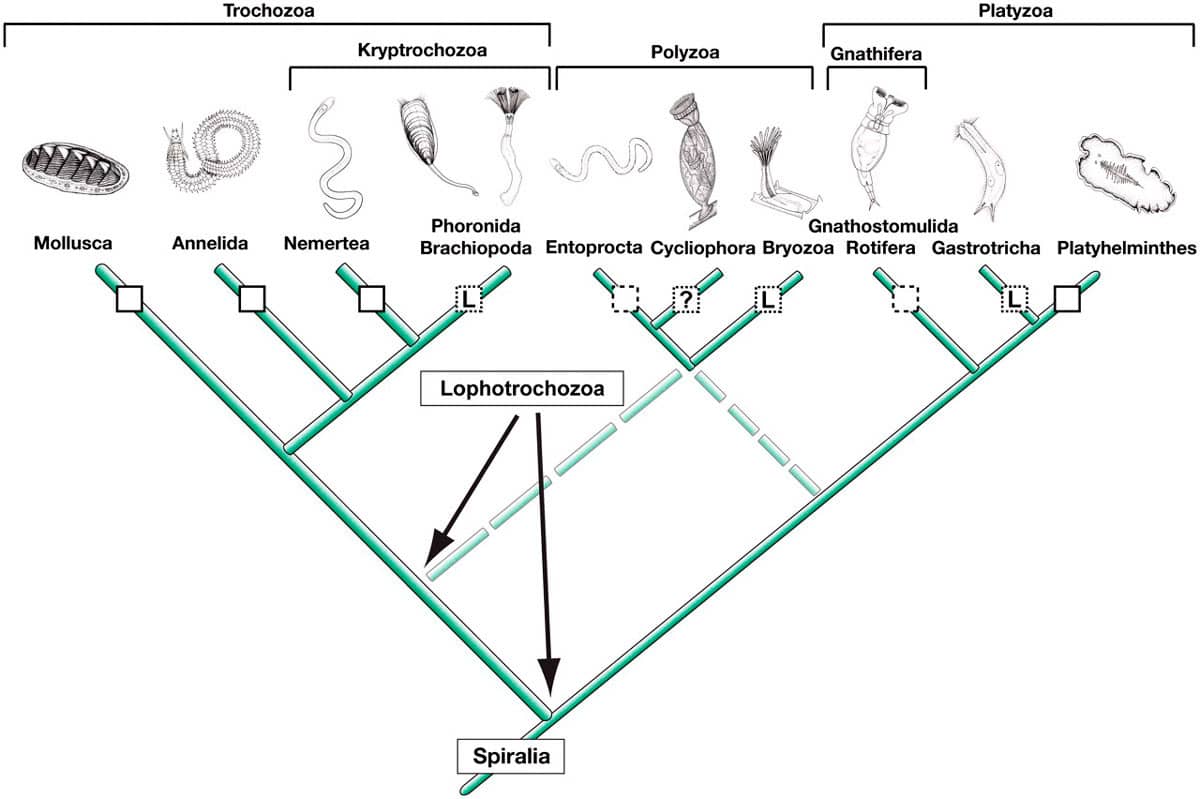
Os Protostomia são divididos atualmente em dois grandes clados, muitas vezes chamados de superfilos:
Os representantes de Spiralia exibem uma vasta diversidade de planos corporais, e as relações evolutivas internas desse clado ainda são motivo de muito debate entre os biólogos filogeneticistas.
Podemos destacar, entretanto, alguns clados mais fortemente sustentados na maioria das análises filogenéticas:
Gnathifera, que reúne os filos Rotifera, Micrognathozoa e Gnathostomulida, pela presença de aparato mandibular cuticularizado complexo (mastáx).
Polyzoa, que inclui Entoprocta, Cycliophora e Bryozoa (ou Ectoprocta), com adultos sésseis que se reproduzem por brotamento, reunidos com base em dados moleculares, mas sem sinapomorfias morfológicas.
Trochozoa, com Annelida, Mollusca, Nemertea, Phoronida e Brachiopoda, grupo com larvas trocóforas típicas.
Platyzoa, que inclui Platyhelminthes, Gastrotrichia e os filos incluídos no clado Gnathifera, é recuperado em boa parte das análises, mas ainda é motivo de muitos debates, e diversas análises não corroboram a formação desse clado ou, quando o fazem, apresentam relações instáveis e com baixo suporte filogenético.
Agora que você já viu um pouco sobre as relações filogenéticas dentro de Spiralia, vamos abordar dois importantes filos de metazoários espirálicos: Annelida, que inclui poliquetas, minhocas e sanguessugas, e Mollusca, que abrange animais muito familiares, como caracóis, lesmas, ostras, mexilhões, lulas e polvos. Aqui serão apontados os aspectos básicos da arquitetura corporal, fisiologia e biologia desses animais, bem como a classificação mais atual de cada um desses grupos.
Identificar características evolutivas comuns a Annelida e Mollusca
Antes de iniciar o estudo das características morfofuncionais e evolutivas de cada filo, é importante ressaltar dois pontos fundamentais na evolução de Annelida e Mollusca: a presença da larva trocófora e o surgimento do celoma, este último primordial na evolução da arquitetura animal como um todo.
Anelídeos e moluscos estão incluídos no clado Trochozoa, caracterizado pela presença de larvas trocóforas típicas. Essas larvas são essencialmente planctotróficas, ou seja, se alimentam de plâcnton, têm forma de pião e são caracterizadas por suas bandas ciliares, formadas por cílios. Tipicamente, elas possuem duas bandas equatoriais, sendo uma anterior à boca (prototroco) e a outra, nem sempre presente, posterior (metatroco). Além disso, elas podem ter uma banda ciliar perianal (telotroco) e uma mesoventral (neurotroco). O batimento desses cílios promove seu deslocamento na água e auxilia na captura de alimentos.
Outras peculiaridades das trocóforas são:
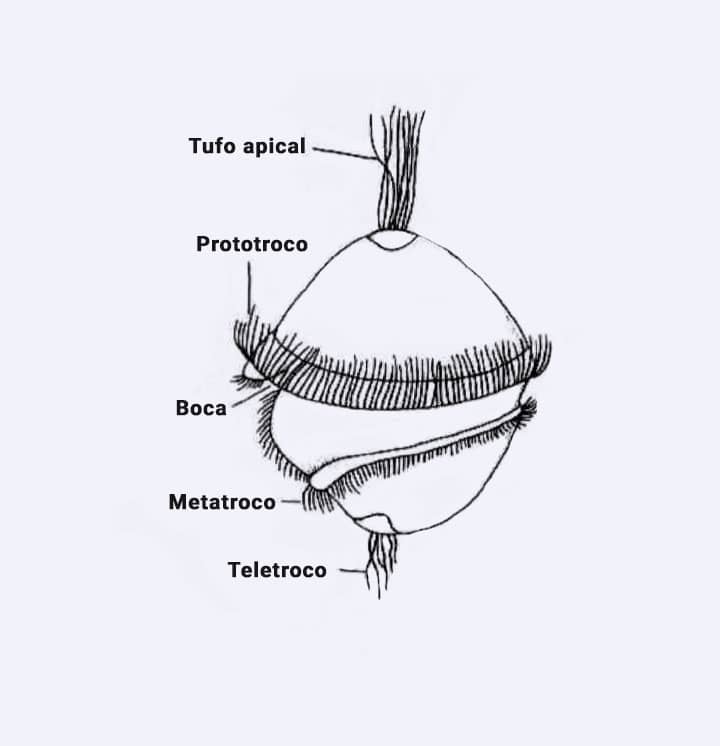
Vista externa da larva trocófora.
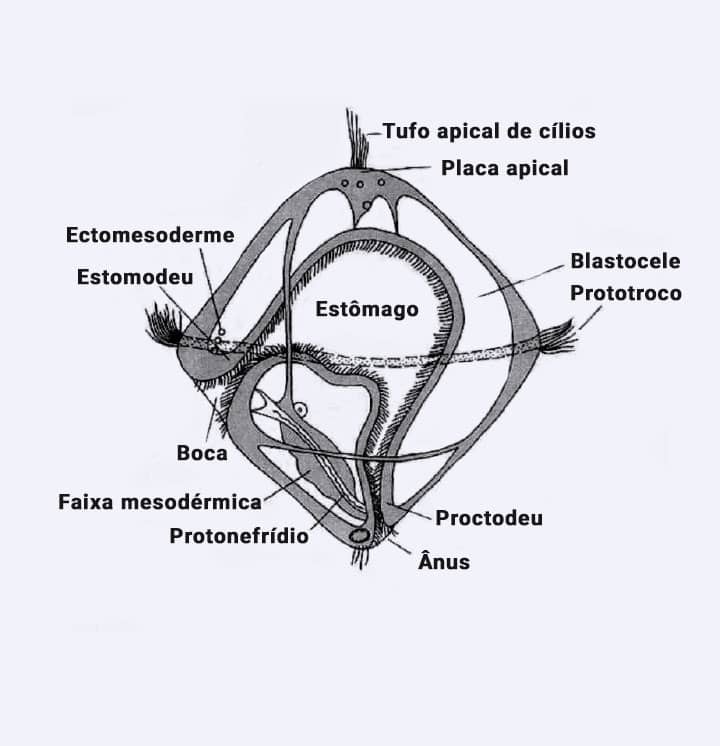
Anatomia interna da larva trocófora.
Não! Larvas trocóforas ocorrem em estágios iniciais do ciclo de vida de vários protostomados marinhos. Porém, alguns grupos não apresentam a trocófora típica, mesmo dentro de Trochozoa — esse é o caso de Nemertea, em que o prototroco é reduzido nas larvas pilídios —, Brachiopoda e Phoronida. No mais, pelo menos em Entoprocta (filo classificado fora de Trochozoa), há a formação de uma trocófora típica. Assim, a presença da trocófora é considerada por muitos sistematas como uma caraterística derivada do ancestral protostomado e mantida em alguns grupos, caracterizando uma plesiomorfia para Trochozoa. Atualmente, a hipótese mais aceita afirma que a trocófora estaria presente no ancestral protostomado, sendo perdida em muitos grupos recentes de Spiralia e em todos Ecdysozoa, clado formado por artrópodes, nematódeos e afins.
Existem duas teorias mais prevalentes sobre a origem das trocóforas:
Teoria da Trochaea
Afirma que ela surgiu em um ancestral em forma de gastrea planctotrófica (Trochea), cujo anel ciliar ao redor do blastóporo era usado para nadar e capturar alimento. Essa estrutura foi perdida no adulto rastejante, mas se manteve na larva pelágica, originando o prototroco e o metatroco.
Teoria de Ivanova-Kazas
A trocófora teria surgido secundariamente de uma larva lecitotrófica rastejante, cujos cílios curtos e espaçados teriam se alongado e se aglomerado para formar as bandas ciliares natatoriais.
A larva lecitotrófica se alimenta da sua própria reserva de nutrientes, presente no vitelo. Diferente da larva planctotrófica, que obtém alimento do meio externo, especificamente do plâncton.
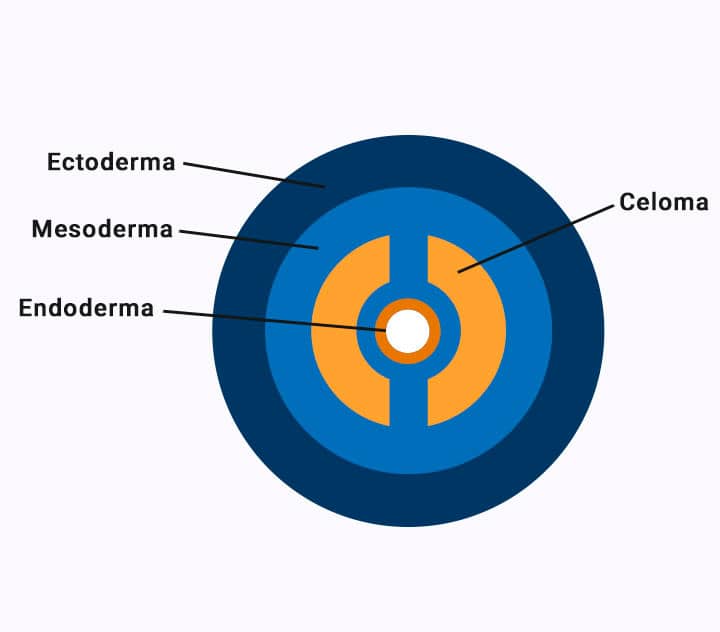
Uma grande novidade evolutiva comum aos anelídeos e moluscos (e a vários outros metazoários) é o celoma verdadeiro, uma cavidade corporal de origem embrionária dentro da mesoderme, preenchida por fluido e revestida por tecido peritoneal. O celoma se origina por dois processos distintos:
Tipicamente, os protostomados celomados, à exceção dos quetognatos, têm celomas esquizocélicos, enquanto deuterostomados possuem celomas enterocélicos. No entanto, a forma dessa cavidade é bastante variável, podendo ser ampla e até mesmo dividida em muitas câmaras, como em muitos anelídeos e equinodermos, ou restrita a espaços corporais menores, como no caso de moluscos e artrópodes. O celoma está presente ao menos na fase de embrião nos celomados, mesmo quando a cavidade celômica se encontra reduzida nos adultos. A grande diversidade adaptativa e de formas celomadas nos animais indica que essa cavidade tem papel extremamente importante em suas histórias evolutivas.
A cavidade celômica propiciou o maior espaço para o desenvolvimento e surgimento de órgãos, como gônadas e órgãos excretores elaborados, contribuindo para o aumento de tamanho e complexidade corporal. Além disso, o fluido celômico apresenta diversas funções, como transporte de nutrientes e gases, processamento de produtos excretados e local para maturação de gametas e incubação de embriões.
Outro advento do celoma está atrelado à propriedade de incompreensibilidade do fluido, que permite a sustentação do corpo por meio de um esqueleto hidrostático. Seu funcionamento junto à musculatura corporal força o líquido para outras regiões corporais, levando a modificações e expansões em seu formato e, consequentemente, promovendo a movimentação animal (esse assunto será visto com mais detalhes no estudo dos anelídeos) e/ou a eversão de estruturas, como probóscides e introvertes.
A homologia entre os diferentes celomas, muito utilizada no passado para justificar relacionamentos filogenéticos próximos entre táxons diversos (Annelida e Arthropoda), parece não ocorrer, já que suas morfologias e ontogenias são diferentes.
Nielsen (2012), porém, reúne Annelida, Mollusca e Nemertea no clado Schizocoelia, com base na origem única e diferenciada do celoma compartilhado por esses táxons. Segundo o autor, esses grupos são caracterizados pela formação de sacos celômicos laterais originados por esquizocelia, a partir de mesoblastos primários descendentes do mesentoblasto 4D da clivagem espiral.
Neste vídeo, o especialista aborda o surgimento das cavidades corporais nos metazoários, mostrando a diferença entre um pseudoceloma e um celoma verdadeiro.
Para desbloquear o próximo módulo, é necessário que você responda corretamente a uma das seguintes questões:
Clique aqui e retorne para saber como desbloquear.
Distinguir as características morfofuncionais e os padrões evolutivos do filo Annelida
O Filo Annelida é composto por animais bilaterais triploblásticos, protostomados, vermiformes e alongados, dotados de segmentos com compartimentos celômicos e feixes de cerdas quitinosas na maioria das espécies. As aproximadamente 22 mil espécies são mais abundantes em ambientes marinhos, caso dos poliquetas, que vivem em regiões entre marés até áreas profundas, rastejando sob pedras, ocupando areia e lodo no fundo dos oceanos, ou vivendo em galerias e tubos.
A radiação para ambientes de água doce e ambientes terrestres úmidos foi pequena, exceto para minhocas e sanguessugas, que foram bem-sucedidas nesses ambientes.
Anelídeos são cosmopolitas, com indivíduos intersticiais que vão de poucos milímetros até espécies de três metros de comprimento, e com grande variedade de coloridos. A maioria é de vida livre, mas alguns são ectoparasitas, como as sanguessugas, e muitos são comensais. De maneira geral, anelídeos apresentam grande variedade de histórias de vida e estratégias alimentares, refletidas na alta plasticidade do corpo segmentado.
No comensalismo, há a relação ecológica entre duas espécies, em que uma se beneficia sem causar prejuízo à outra.
As variações de ciclos de vida e hábitos alimentares, que incluem desde espécies detritívoras até parasitas, são uma razão. Mas o amplo celoma, aliado a uma das características mais evidentes dos anelídeos — a metameria —, está entre as principais causas.
A metameria verdadeira resulta na repetição interna e externa (homologia seriada) de partes semelhantes ao longo do corpo, com cada segmento separado em blocos idênticos por septos intersegmentares mesodérmicos. Cada segmento (metâmero) é formado por um bloco celômico preenchido por fluido e com repetições de musculatura e da maioria dos sistemas, como circulatório, nervoso e excretor. A metameria melhorou consideravelmente a eficácia das contrações musculares, tornando a locomoção mais ativa e rápida, e permitindo maior especialização corporal e independência de segmentos distintos.
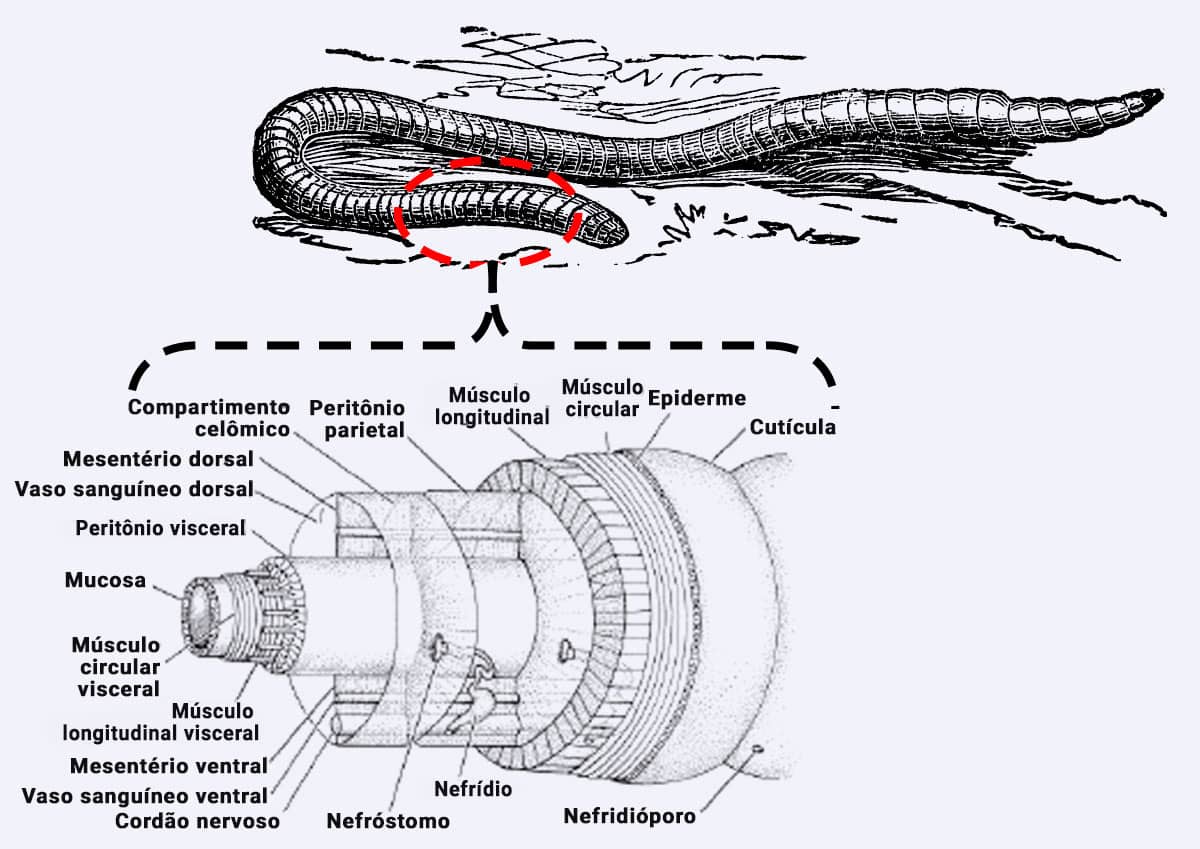
Ao mesmo tempo, esses avanços exigem maior complexidade: o afastamento dos tecidos internos e externos pelo celoma requer sistemas de transporte, de trocas gasosas e de excreção mais elaborados. Esse arranjo seriado corporal é bem representado nas minhocas terrestres, no entanto, apresenta vários graus de redução nos distintos grupos de anelídeos, como em muitos poliquetas e nas sanguessugas.
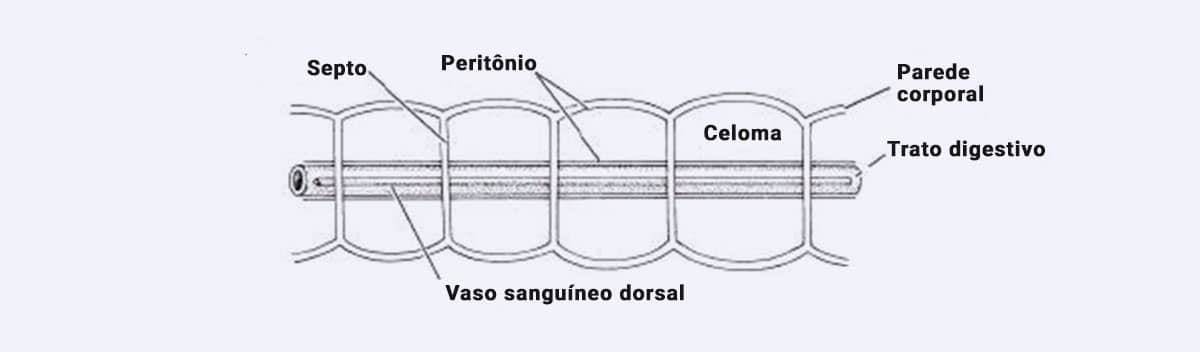
A metameria é resultante do crescimento teloblástico — pela proliferação de bandas mesodérmicas segmentares pareadas a partir da zona posterior de crescimento do embrião localizada à frente da região anal. Entretanto, ela não é uma exclusividade dos anelídeos, surgindo independentemente ao menos três vezes nos metazoários, já que também ocorre em artrópodes e cordados.
A metameria, inclusive, já foi usada equivocadamente para justificar um possível relacionamento entre anelídeos e artrópodes no passado (Hipótese Articulata).
Existem outros metazoários com padrões de segmentação corporal ou repetição de estruturas, porém essa característica é oriunda de segmentação ectodérmica, não sendo os segmentos funcionalmente independentes, como no caso das tênias (Platyhelminthes). Esse processo é chamado de pseudometameria.
Conhecidas essas novidades evolutivas dos anelídeos, veja agora as características morfofuncionais gerais do grupo. Mas, antes, é importante ressaltar que tradicionalmente o filo está dividido em duas classes:
Para fins didáticos, manteremos essa classificação nas abordagens das características gerais dos anelídeos, no entanto, análises filogenéticas recentes de grandes conjuntos de dados moleculares não corroboram essa classificação. Veremos um pouco mais sobre isso no fim deste módulo. Abaixo, exemplificamos a variedade de anelídeos:
Os anelídeos apresentam grande variedade estrutural de habitats e hábitos que influenciam na forma corporal. De maneira geral, a região cefálica corresponde ao prostômio pré-oral seguido do peristômio circum-oral, ambos pré-segmentares, com a porção terminal do corpo formada pelo pigídio pós-segmentar, que porta o ânus. A segmentação metamérica corporal é visível externa e internamente, podendo ser homônoma, típica de formas errantes predadoras e minhocas, ou heterônoma, comum em espécies mais sedentárias, filtradoras e comedoras de depósito.
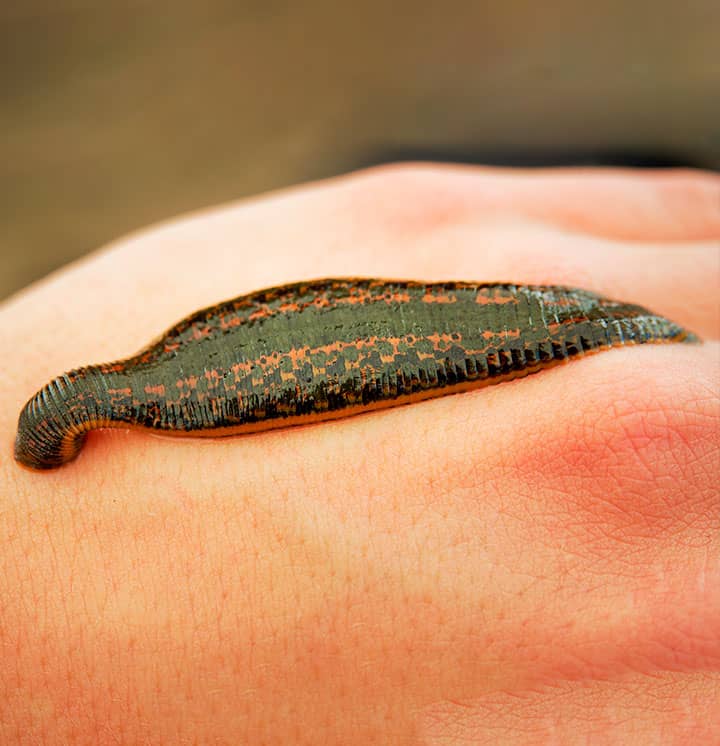
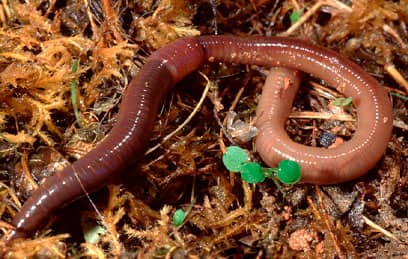
Muitos poliquetas possuem apêndices cefálicos bem desenvolvidos (e.g., palpos e tentáculos prostomiais, cirros peristomiais). Em hirudíneos, o corpo pode ser achatado dorsoventralmente, apresentando uma ventosa anterior (oral) e uma posterior, e dotado de anelações superficiais (ânulos) que não refletem a segmentação interna (impressão de mais segmentos), conforme as imagens abaixo, que demonstram a morfologia externa de alguns anelídeos.

O tegumento desses animais é coberto por uma cutícula fina, seguida de epiderme ciliada e secretora. Logo abaixo se encontra uma camada de músculos circulares mais externos e feixes musculares longitudinais mais internos. Cerdas epidérmicas típicas de anelídeos, recobertas por β-quitina, ocorrem ao longo do corpo, com variações de forma e tamanho. Na maioria dos poliquetas, os feixes de cerdas são dispostos aos pares em lobos carnosos musculares chamados de parapódios, e nas sanguessugas as cerdas são ausentes. Músculos oblíquos movimentam parapódios e/ou cerdas.
Na segmentação metamérica corporal homônoma, os segmentos são similares entre si.
Na segmentação metamérica corporal heterônoma, os segmentos são especializados e diferenciados.
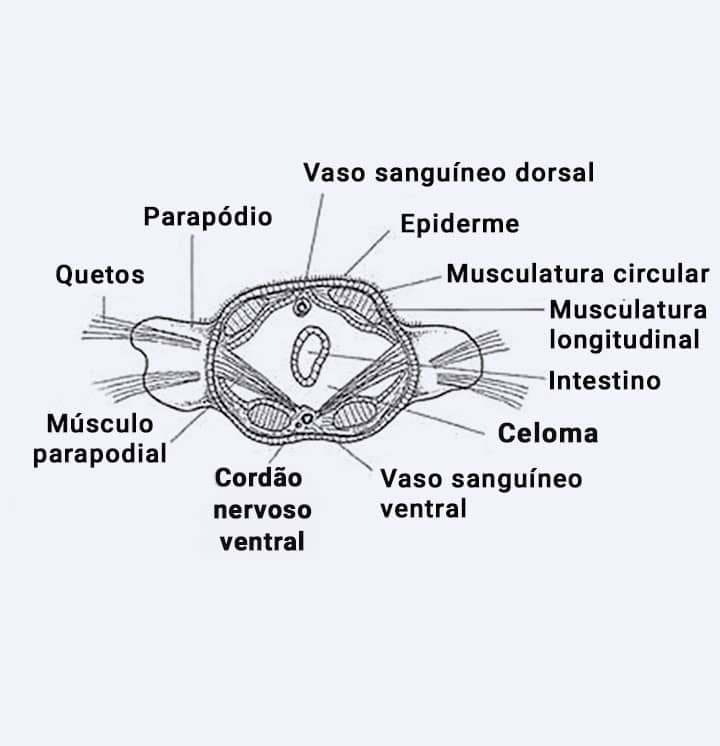
Nereis (Polychaeta).
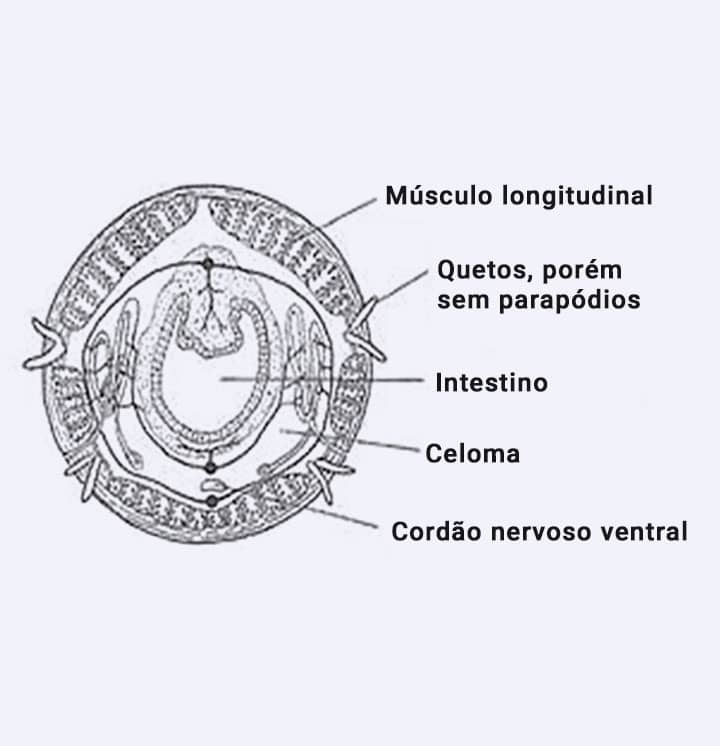
Lumbricus terrestres (Oligochaeta).
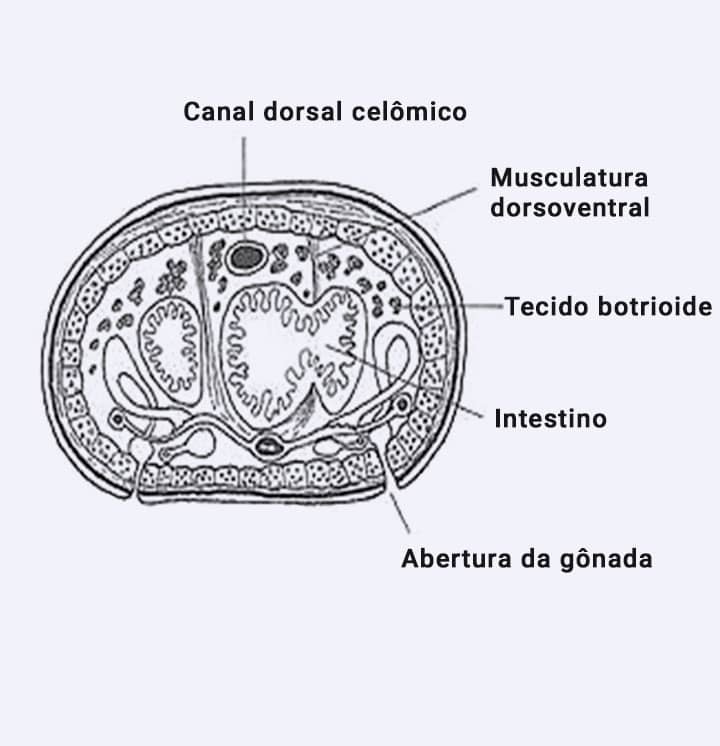
Hirudo (Hirudinea).
O celoma, como já destacado, é primitivamente arranjado em espaços pareados e lateralmente simétricos, separados longitudinalmente por um mesentério dorsal e um ventral; septos musculares intersegmentares transversais separam um segmento do outro, mas foram perdidos secundariamente em alguns poliquetas. Em hirudíneos, há a redução drástica do espaço celômico, que é preenchido por tecido dérmico botrioide e fica restrito a pequenos canais e espaços que aumentam o sistema circulatório.
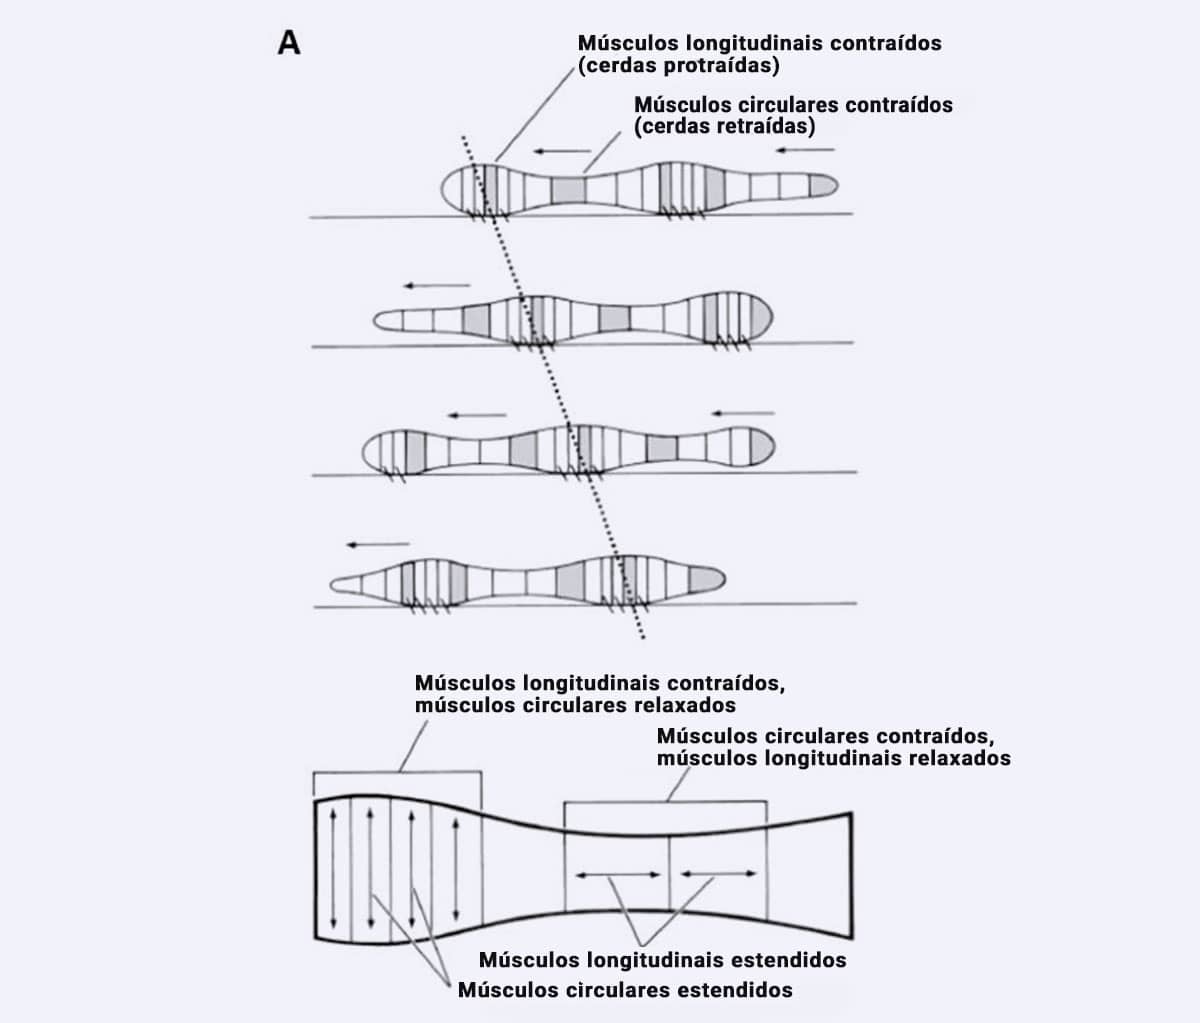
A sustentação corporal se dá pelo esqueleto hidrostático celômico, exceto nas sanguessugas, cuja estrutura corporal maciça promove essa sustentação. Em poliquetas, a locomoção típica é o rastejamento no substrato, feito com auxílio dos parapódios, que servem de apoio, e das cerdas, que fornecem tração ao movimento. Contrações e relaxamentos alternados da musculatura longitudinal em lados corporais opostos, com auxílio do esqueleto hidrostático, promovem ondas metacronais laterais da parte posterior para a anterior. Ondas de baixa amplitude e alta frequência geram movimentos fortes e lentos, enquanto o aumento na amplitude das ondas causa movimentos rápidos, mas com pouco apoio no substrato. A natação é gerada por ondas de grande amplitude, mas é pouco eficiente e de alto custo, sendo usada em fugas de potenciais predadores.
Formas heterônomas e com septos intersegmentares reduzidos escavam galerias com parapódios em forma de pá (e.g., Glycera) ou por alternância na largura de regiões corporais (e.g., Arenicola).
Poliquetas tubícolas têm baixa mobilidade, com os tubos secretados pelo animal conferindo sustentação. Demonstramos abaixo as etapas da locomoção em poliquetas:
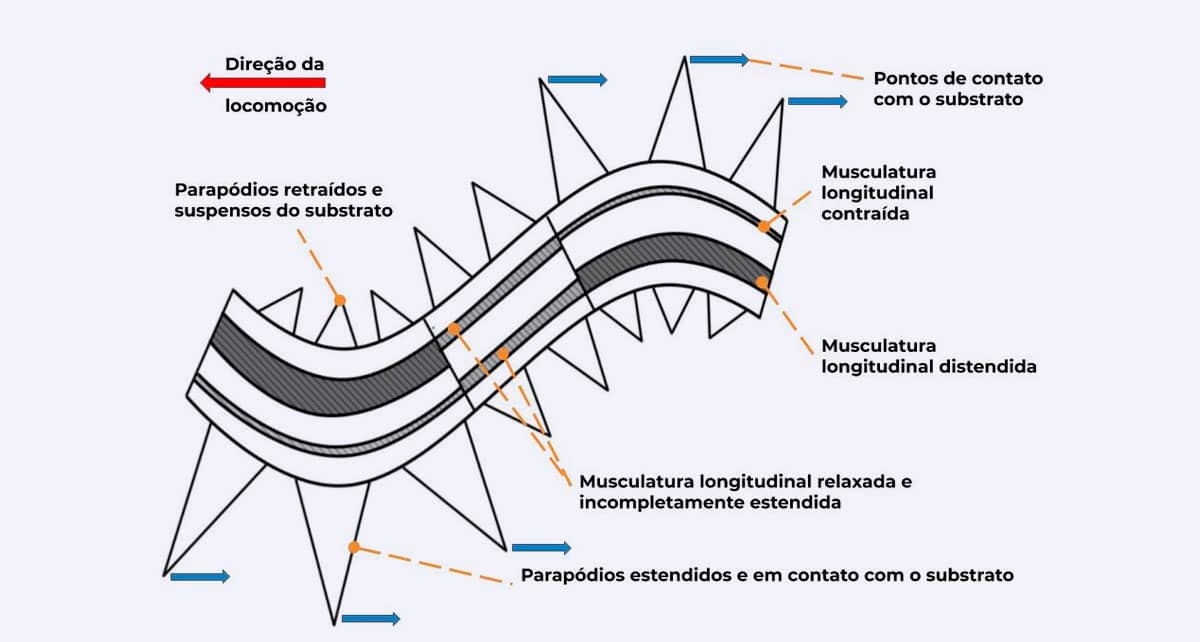
Rastejamento serpentiforme em Nereis.
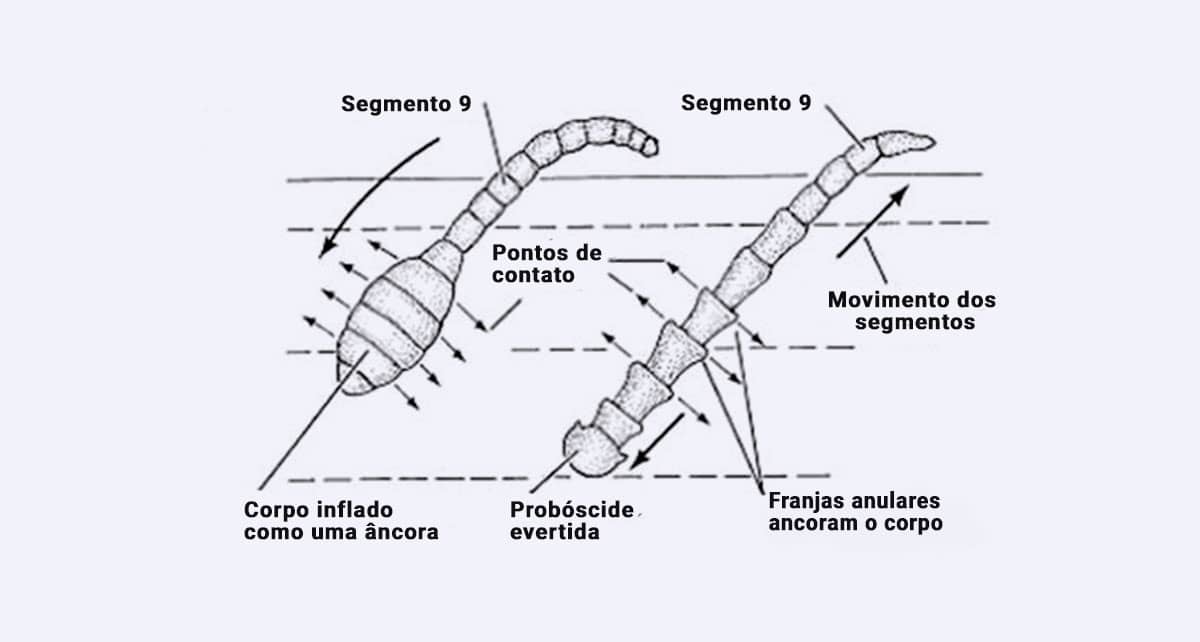
Escavação do substrato em Arenicola.
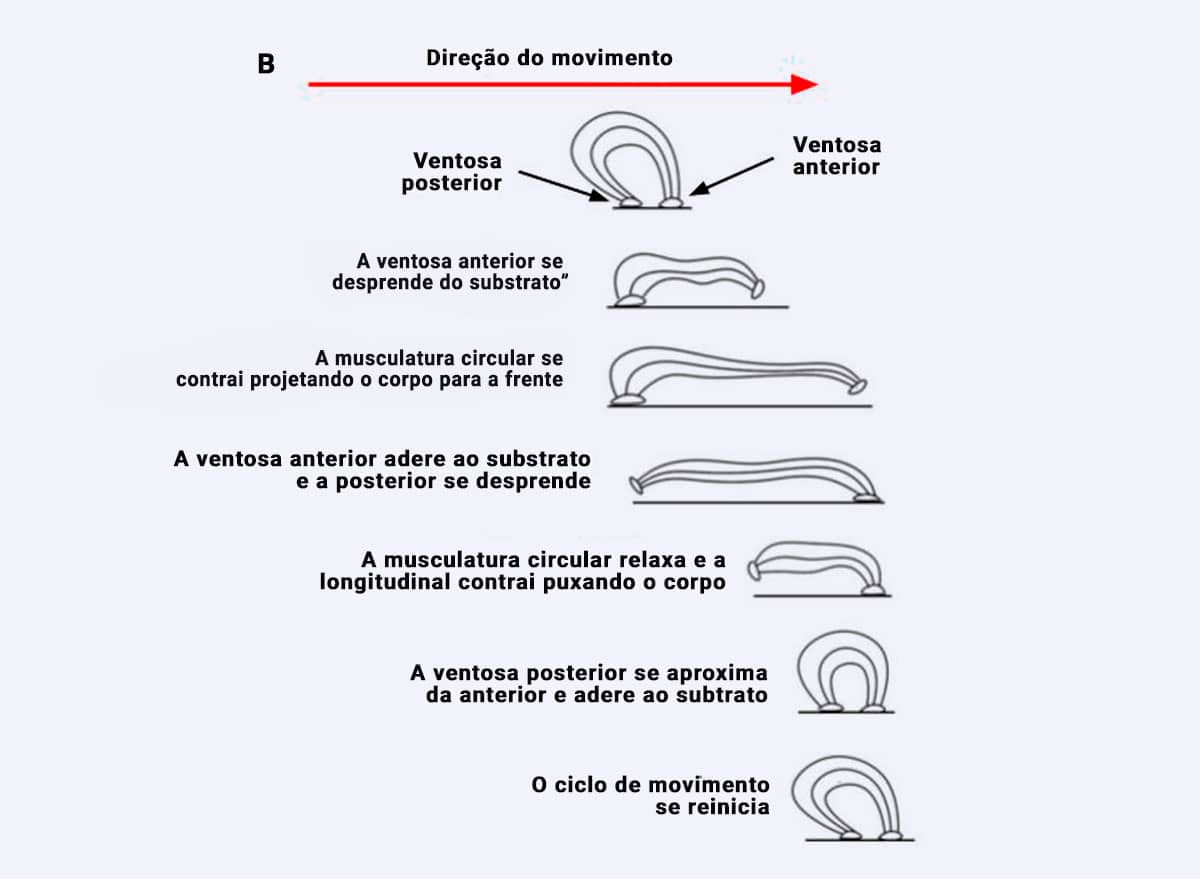
Em oligoquetas, a escavação é realizada por ondas peristálticas propulsoras por meio da contração alternada da musculatura longitudinal e circular, e não por ondulação lateral. Cada segmento funciona de maneira mais ou menos independente. Já nos hirudíneos, o preenchimento do celoma por tecido impossibilita movimentos por forças hidrostáticas, e a locomoção é feita por movimentos de mede-palmos com auxílio das ventosas. Sanguessugas também podem nadar por meio de ondas para cima e para baixo, propagadas a partir da extremidade anterior.
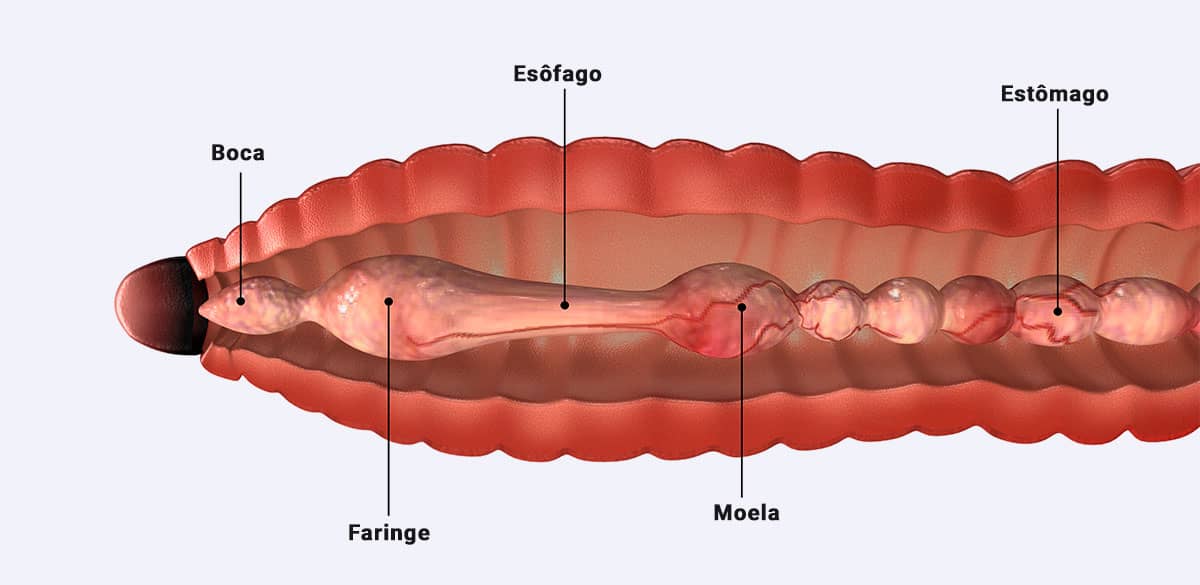
O trato digestivo é completo e não reflete a segmentação metamérica, sendo dividido em região anterior (estomodeu), mediana (mesodeu) e posterior (proctodeu). O estomodeu e o proctodeu têm origem ectodérmica e são revestidos de cutícula, com o primeiro contendo a faringe e o esôfago, e o último conectado ao ânus. Já no mesodeu, de origem endodérmica, há um estômago secretor de enzimas e muco, onde ocorre a maior parte da digestão e absorção de nutrientes.
Mas o trato digestivo não é apenas um tubo reto, havendo diversas regionalizações e estruturas associadas. Em oligoquetos, o esôfago é modificado em um papo armazenador anterior e uma moela trituradora posterior, com glândulas calcíferas que retiram o excesso de cálcio do substrato ingerido, lançando-o no intestino, por onde passa sem ser reabsorvido, e evitando a hipercalcemia do sangue. Hirudíneos possuem mandíbulas cortantes protraíveis em “Y” e glândulas secretoras de hirudina, uma substância anticoagulante, essenciais para a alimentação hematófoga. O mesodeu em oligoquetos terrestres apresenta projeções cegas (cecos intestinais) e uma prega (tiflossole) que aumentam a superfície de absorção alimentar, enquanto em hirudíneos ele é ampliado por numerosos cecos armazenadores, já que a digestão de sangue é bastante lenta, podendo levar meses.
Os hábitos alimentares são muito variados em poliquetas. Por convenção, eles se dividem em formas errantes (vágeis) e sedentárias.
Formas errantes (vágeis)
A maioria é de predadores ativos ou saprófagos, possuindo mandíbulas e faringes eversíveis armadas com dentes, alguns até com glândulas de veneno.
Formas sedentárias
São filtradoras e comedoras de depósito, sendo necessária a diferenciação de partes do corpo para auxiliar na captura de alimentos.
Assim como os detritívoros, alimentam-se de restos de organismos mortos.
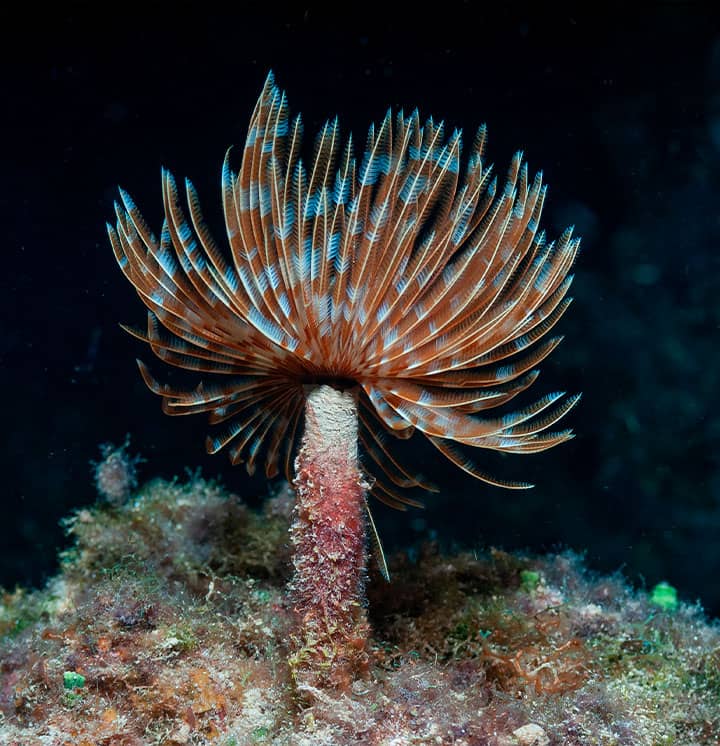
Os construtores de tubos geralmente possuem palpos prostomiais, formando uma coroa tentacular ciliada que é suspensa para fora do tubo para capturar partículas em suspensão na água.
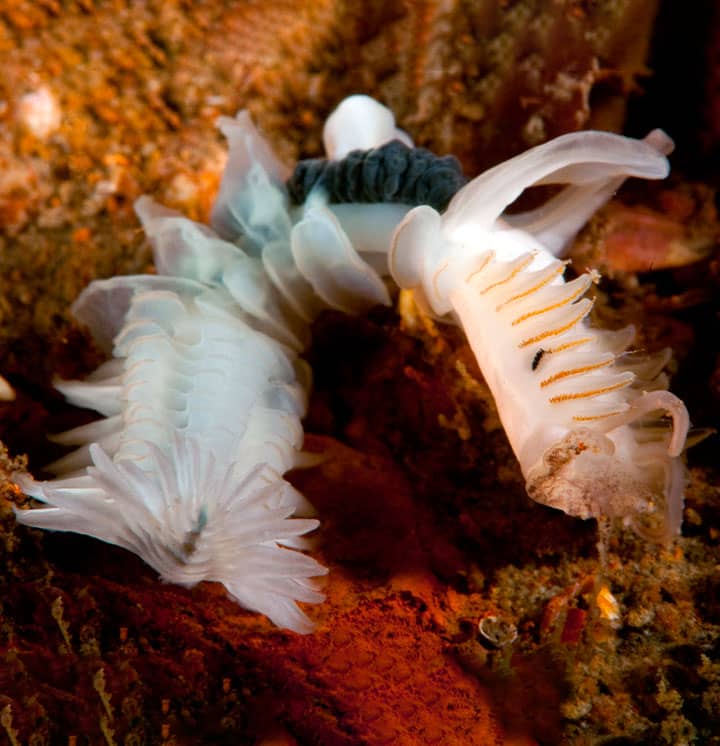
Alguns grupos vivem em galerias em forma de “U” no substrato, caso de Chaetopterus com diferenciação regional de parapódios (abanos) que movem a água por meio da galeria, capturando o alimento pela produção de uma bolsa mucosa que adere partículas carreadas na água. Essa bolsa é enrolada e levada à boca periodicamente.
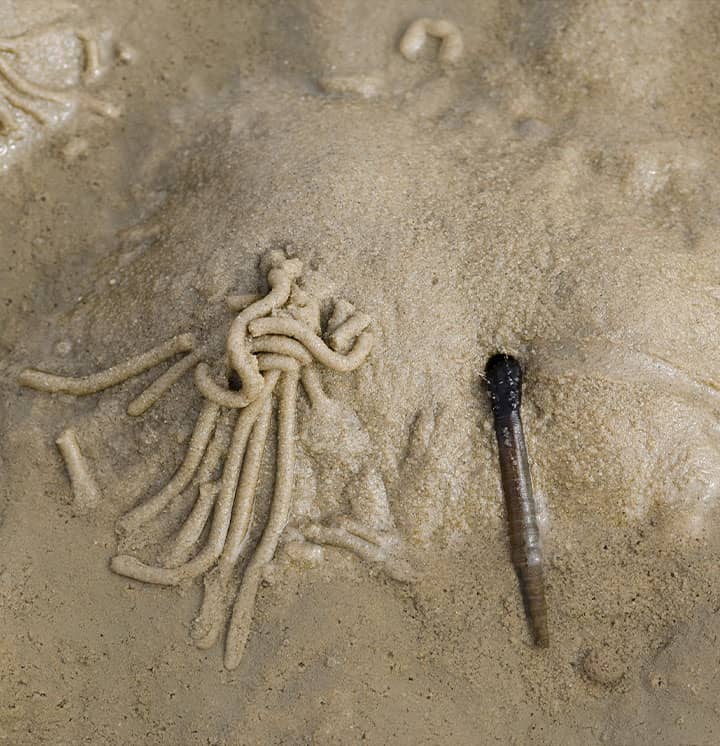
Os comedores de depósito, como os Arenicola, geralmente constroem galerias em substrato mole, ingerindo o substrato de forma não seletiva e retirando dele os nutrientes ou selecionando partículas por meio de tentáculos prostomiais que tateiam o solo.
Se em poliquetas podemos observar tamanha diversidade na alimentação, em oligoquetas e hirudíneos há pouca variação. A maioria das minhocas constitui comedores diretos de depósito engolido à medida que escavam o substrato, contribuindo para o processo de aeração e mineralização de nutrientes do solo (como as Lumbricus terrestris). Além disso, os produtos digeridos pelos oligoquetos constituem importante adubo para o solo, conhecido como húmus de minhoca.
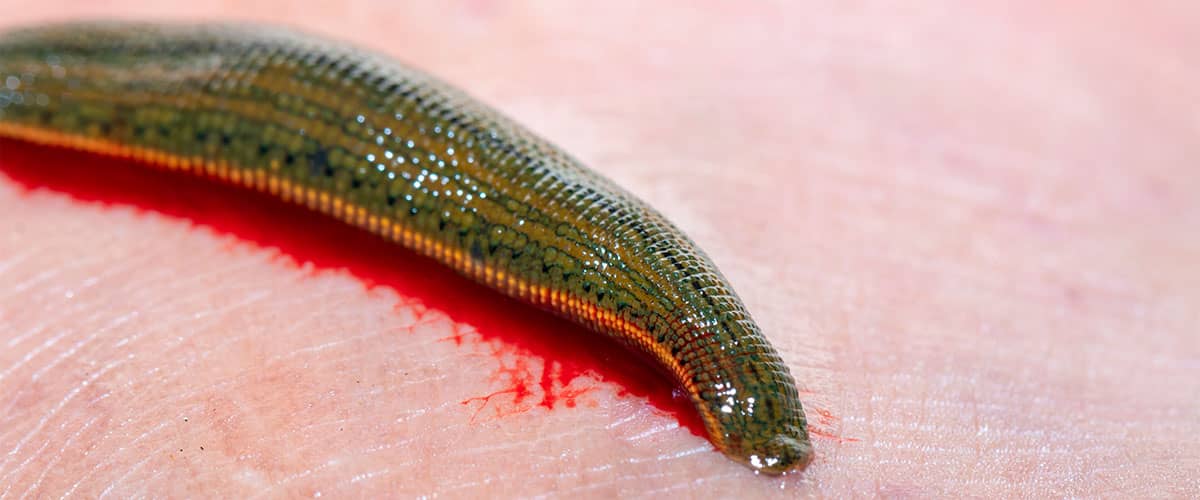
A maioria dos hirudíneos é ectoparasita, sugando fluidos de seus hospedeiros vertebrados. Eles se prendem ao hospedeiro pela ventosa oral, pressionando o ápice de suas mandíbulas contra o tegumento do hospedeiro, vertendo e sugando o fluido por ação muscular da faringe. As sanguessugas hematófagas secretam via glândulas salivares um anticoagulante (hirudina), além de substâncias anestésicas e vasodilatadoras. No entanto, algumas espécies de oligoquetos límnicos e hirudíneos são carniceiras ou predadoras, capturando presas por meio de mandíbulas ou da probóscide.
Neste vídeo, destacamos a importância ecológica e econômica, especialmente na aquicultura e agricultura, de poliquetas e minhocas.
Estruturas corporais complexas, de grande dimensão e tridimensionais, exigem um sistema de transporte de nutrientes e gases eficiente, já que a simples difusão célula-célula perde eficiência com o aumento corporal. Além disso, a regionalização dos sistemas (e.g. absorção de nutrientes no estômago e trocas gasosas limitadas a regiões específicas) também requer que os produtos sejam levados para todas as partes do animal. Assim, a criação de um sistema de circulação interno para suprir todo o organismo se faz necessária.
O sistema circulatório dos anelídeos é fechado, primitivamente inclui dois vasos longitudinais, um dorsal, que conduz o sangue anteriormente, e um ventral, com fluxo posterior, além de redes de capilares conectores nos parapódios, nos septos e ao redor do intestino, para promover trocas entre esses vasos. Embora não haja um coração bombeador, músculos intrínsecos da parede dos vasos e a própria musculatura do corpo promovem a movimentação sanguínea. Vasos contráteis cegos podem auxiliar nesse processo em espécies de pouca movimentação, como poliquetas tubícolas.
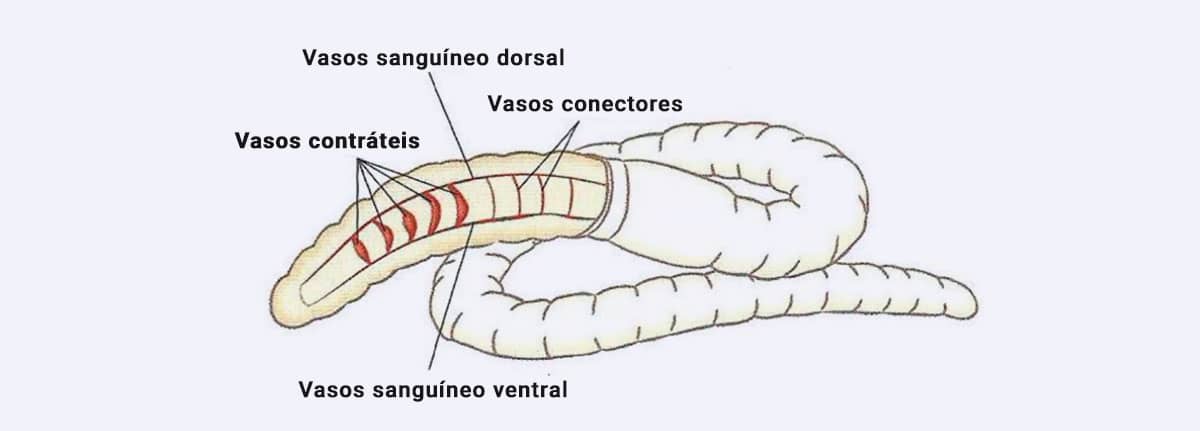
Em espécies com septos reduzidos, o celoma assume papel circulatório, com redução dos vasos. Sanguessugas têm sistemas circulatórios diferenciados. O celoma fica repleto de tecido botrioide, formando canais celômicos onde o fluido circula, com os vasos reduzidos ou ausentes.
O fluido sanguíneo (hemolinfa) é acelular, sendo a presença de pigmentos respiratórios, que facilitam a difusão de oxigênio, necessária pelo aumento do tamanho corporal.
A maioria dos anelídeos possui hemoglobina, embora hemocianina, clorocruorina e hemeritrina possam ocorrer (nenhum outro filo apresenta tamanha variedade de pigmentos). Em espécies com vasos reduzidos, os pigmentos respiratórios ocorrem dentro de corpúsculos no fluido celômico. Algumas espécies de poliquetas reduzem o estresse por depleção de oxigênio durante a maré baixa, capturando oxigênio em excesso na maré cheia.
A permeabilidade da superfície externa, em geral, é insuficiente para a maioria dos anelídeos suprir a demanda de oxigênio, estejam eles se movendo ativamente ou não. Em muitos poliquetas e oligoquetos límnicos, brânquias cefálicas e apêndices respiratórios — como a coroa tentacular, também usada na alimentação — ou dorsais são necessários para ampliar essas trocas. Lobos parapodiais, ricos em vasos sanguíneos e com grande superfície, também são utilizados para trocas. Em oligoquetos e hirudíneos terrestres, as trocas gasosas ocorrem apenas por difusão direta no tegumento, mantido úmido por muco ou fluido celômico liberado por pequenos poros dos segmentos.
A excreção é realizada por metanefrídeos metaméricos, que se abrem no segmento anterior ao que estão posicionados; muito frequentemente, possuem dutos conjuntos com gônadas (mixometanefrídeos). Assim, a remoção de resíduos e o balanço hídrico são realizados individualmente em cada compartimento celômico, com o fluido sofrendo ultrafiltração seletiva nos dutos nefridiais (envoltos em capilares sanguíneos). Água, aminoácidos e sais são reabsorvidos, e excretas nitrogenadas formam a urina, que é eliminada via nefridióporo.
No entanto, os órgãos excretores nas larvas e alguns adultos de poliquetas são protonefrídeos, sendo possivelmente o padrão ancestral dos anelídeos. Poliquetas com septos reduzidos também apresentam redução no número de metanefrídeos, já que o celoma passa a ser contínuo. Além dos nefrídios, o tecido cloragógeno, que envolve o tubo digestivo e alguns vasos sanguíneos, e os celomócitos podem ter papel acessório na excreção. Hirudíneos apresentam nefrídios modificados que se abrem em uma cápsula ciliada nos canais botrioidais, com uma bexiga anterior ao nefridóporo.
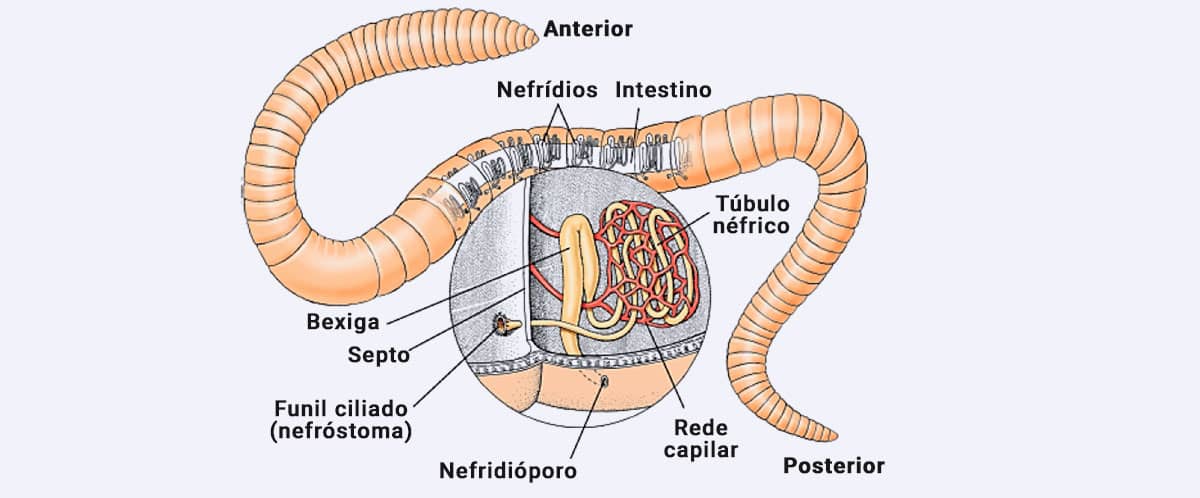
Apesar de a maioria dos poliquetas ser de osmoconformadores e ter a amônia como principal forma de excreta nitrogenada, a regulação iônica é fundamental em espécies que colonizaram ambientes mais diluídos. Esse é o caso de alguns poliquetas estuarinos e oligoquetos terrestres, que produzem urinas mais hipotônicas e têm metanefrídeos com capacidade seletiva elevada, permitindo que mantenham a concentração de sais mais ou menos equilibrada no corpo (osmorreguladores). Tanto minhocas como sanguessugas possuem células especializadas que podem combinar amônia com dióxido de carbono para produzir ureia.
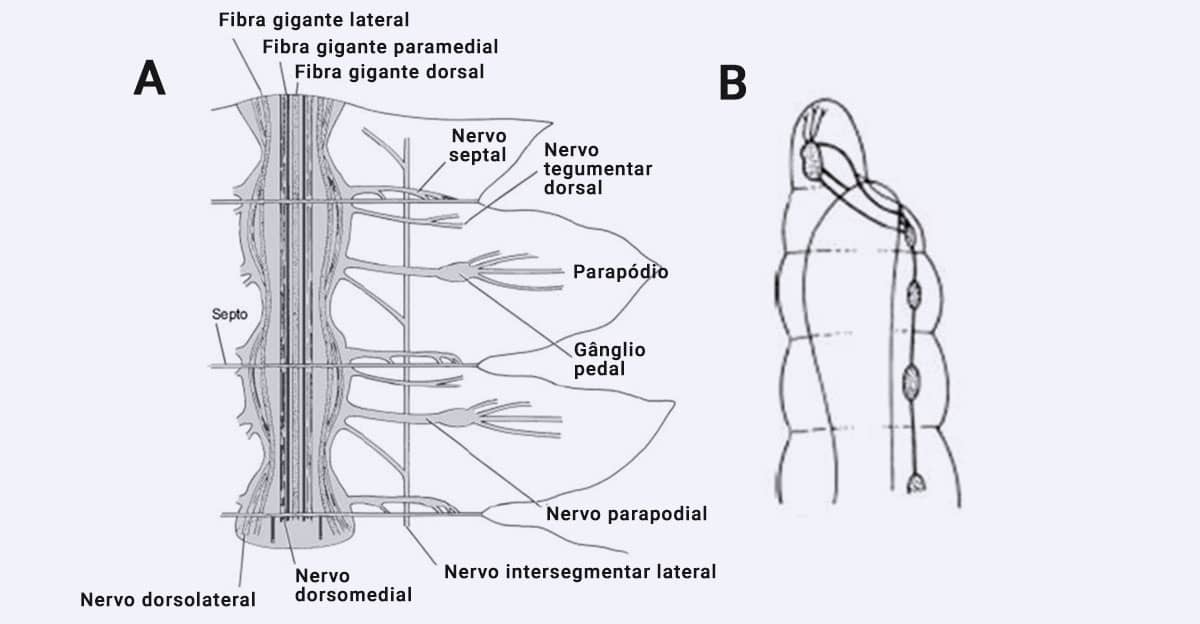
O sistema nervoso anelídeo básico tem um cérebro dorsal tripartido ligado a um gânglio subentérico por conectivos circumfaríngeos, seguido de um ou dois cordões nervosos ventrolongitudinais subepidérmicos. Tipicamente há um par de gânglios por segmento, de onde partem nervos laterais para a parede corporal e o tubo digestivo.
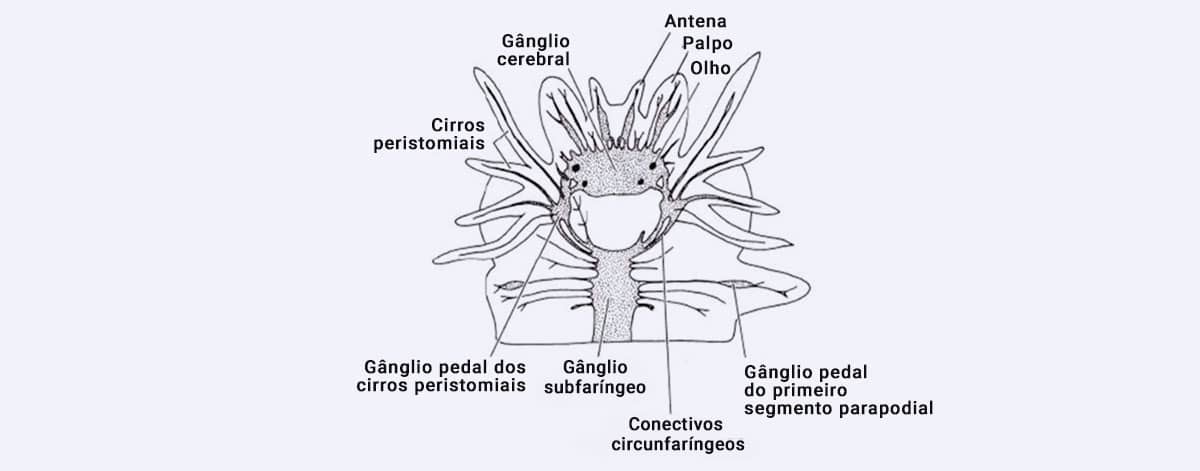
Em poliquetas, há gânglios pedais parapodiais, mas a fusão parcial ou total de cordões e gânglios pode ocorrer. Fibras ou neurônios gigantes únicos, que partem do cordão ventral, ocorrem em muitos grupos, transmitindo impulsos em alta velocidade e promovendo contrações musculares rápidas a estímulos externos (e.g., presença de predador), o que resulta em movimentos de fuga ou retrações em tubos.
Os poliquetas apresentam a maior quantidade de órgãos sensoriais dentre todos os anelídeos, variando quanto à presença e complexidade, de acordo com o estilo de vida. Cerdas mecanorreceptoras e quimiorreceptoras estão espalhadas pelo corpo. O gânglio cerebral emite conectivos para órgãos cefálicos, como tentáculos, olhos e órgãos nucais. Os olhos podem variar desde simples manchas ocelares sensíveis à alteração da luminosidade até estruturas complexas com lentes e fotorreceptores desenvolvidos. Os órgãos nucais são fendas ou depressões quimiorreceptoras, ciliadas, geralmente utilizadas na percepção de alimentos. Formas cavadoras e tubícolas são dotadas de estatocistos para orientação da posição no ambiente. Em oligoquetos, os olhos estão ausentes, mas há fotorreceptores dispersos internamente na epiderme; em hirudíneos, ocorrem de um a cinco pares de fotorreceptores em forma de taça e papilas sensoriais.
A reprodução nos anelídeos é primariamente sexuada, porém poliquetas e alguns oligoquetas dulcícolas apresentam extraordinário poder de regeneração, substituindo partes corporais perdidas. Com isso, algumas espécies se reproduzem assexuadamente por brotamento ou fissão transversal em períodos desfavoráveis.
Poliquetas são dioicos, com fertilização externa e desenvolvimento indireto. O hermafroditismo ocorre apenas em poucas espécies dulcícolas. As gônadas transitórias surgem nos períodos reprodutivos, oriundas do peritônio e variáveis em número e posições nos grupos. Gametas são lançados e maturados no celoma, sendo liberados para o exterior por celomodutos ou nefridiodutos. Os ovos dão origem a larvas trocóforas; em alguns casos, a fertilização pode ser interna ou os ovos ficam retidos no tubo, com desenvolvimento misto e liberação de uma larva lecitotrófica de vida curta.
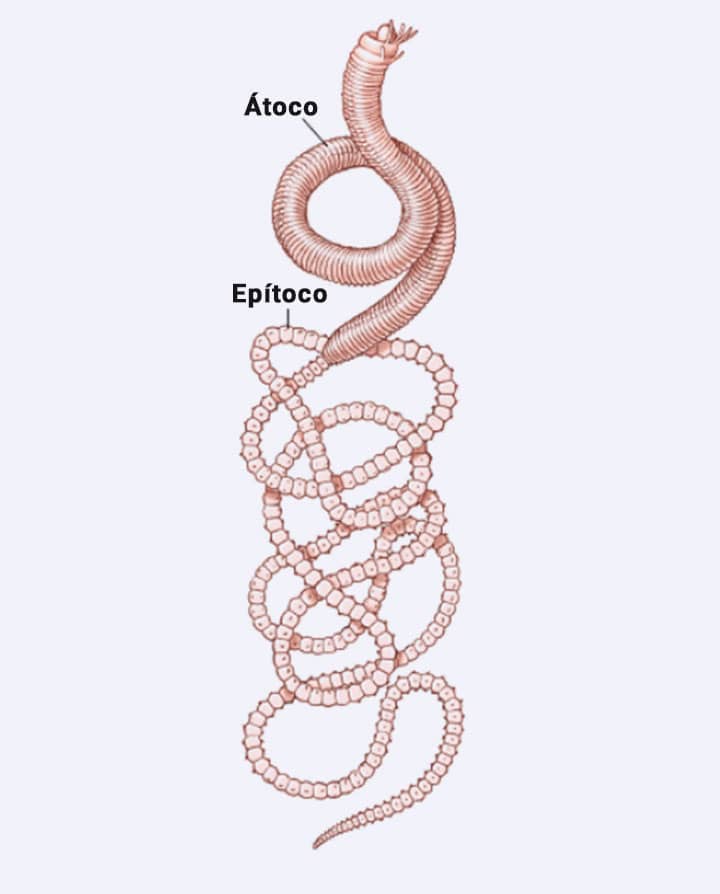
Muitas espécies (e.g., alguns Nereididae, Eunicidae, Syllidae) realizam epitoquia, com a liberação de gametas sincronizada e regulada por feromônios, fotoperíodo ou ciclo lunar, garantindo a alta fertilidade de indivíduos. Nesse processo, há a formação de indivíduos reprodutivos pelágicos (epítoco), que sofrem modificações morfológicas acentuadas, como aumento de olhos, cerdas, parapódios e largura dos segmentos a partir de formas átocas não reprodutivas, seja por transformação do indivíduo inteiro ou por separação da parte posterior do corpo, que depois é regenerado. Esses epítocos nadam até a superfície de forma sincronizada, fazendo um grande enxameamento de indivíduos da mesma espécie. Eunice viridis, o verme-palolo, é um dos mais conhecidos, servindo como fonte de alimento para a população indígena de ilhas da Oceania, que captura os epítocos com redes e baldes, realizando festividades no período.
Oligoquetos e hirudíneos são monoicos, com fertilização cruzada e desenvolvimento direto. Ambos possuem clitelo, uma dilatação epidérmica glandular que envolve segmentos específicos e é responsável pela secreção de muco usado na manutenção da posição de cópula, além da formação do casulo e de albumina para os ovos. A posição e o número de segmentos envolvidos no clitelo variam nas distintas espécies. O grau de desenvolvimento do clitelo também é variável, podendo se desenvolver apenas durante o período reprodutivo, no caso das sanguessugas, ou estar sempre evidente, como na maioria das minhocas terrestres. A presença dessa estrutura serviu para nomear o clado Clitellata.
As gônadas não são transitórias e os aparelhos reprodutores masculino e feminino são complexos, estando presentes no mesmo indivíduo. Eles são formados por testículos e ovários pares que variam em número e estrutura, e com gonóporos que se abrem em segmentos separados. As espermatecas, receptáculos seminais de fundo cego que recebem espermatozoides do parceiro reprodutor, encontram-se separadas dos gonodutos e também variam em número e posição nos segmentos, mas estão sempre à frente do clitelo.
Durante a cópula, há o alinhamento de parceiros em direções opostas, aderidos por secreção mucosa clitelar, de maneira que os gonóporos masculinos de uma minhoca fiquem alinhados com as espermatecas da outra; quando não há alinhamento, forma-se uma calha espermática muscular temporária que conduzirá o esperma até a espermateca.
Após a cópula, cada indivíduo funcionará como uma fêmea inseminada. Poucos dias depois, um casulo rico em muco e albumina é formado ao redor do clitelo, deslizando para frente por ação muscular e movimentos contrários do corpo, recebendo óvulos e depois esperma do parceiro contido na espermateca. A fertilização ocorre no interior do casulo, que se desprende do animal após passar pela cabeça, sendo enterrado no solo. Em sanguessugas, a fecundação é interna, com ambos os parceiros sendo fecundados. O espermatóforo pode ser inseminado via órgão copulador ou por impregnação hipodérmica.
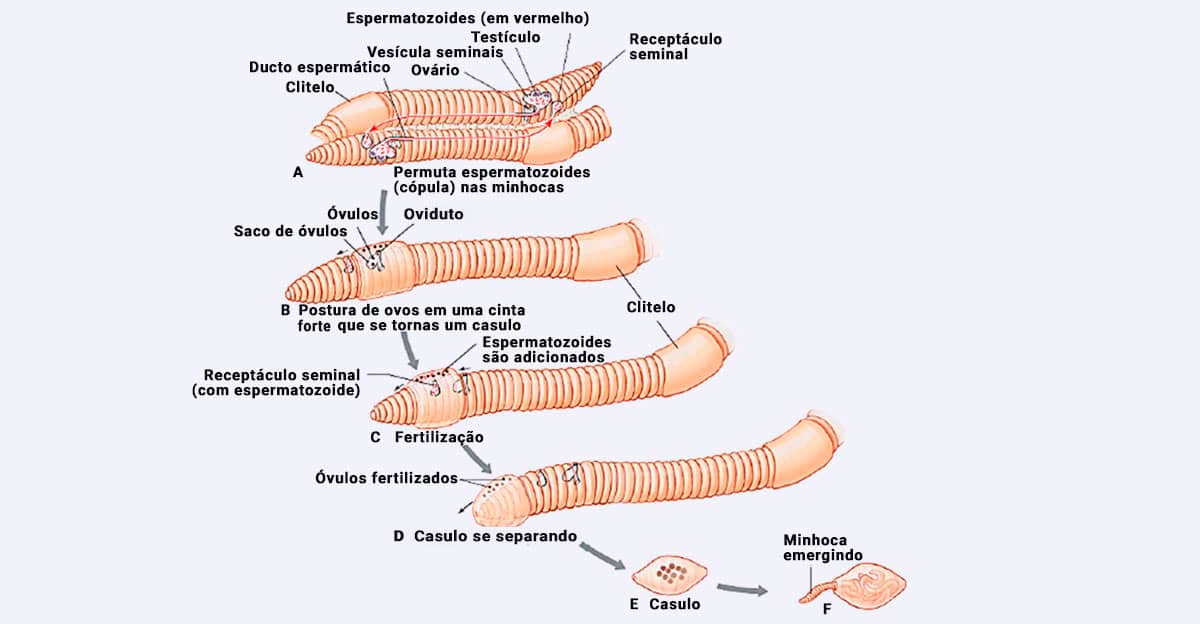
Tanto em minhocas como em sanguessugas já eclode do ovo uma forma juvenil similar ao adulto, mas sem clitelo. O sucesso desses grupos na ocupação de ambientes dulcícolas e terrestres está intimamente ligado aos padrões reprodutivos — hermafroditismo simultâneo, cópula com troca de espermatozoides e desenvolvimento direto, sendo os casulos de espécies terrestres mais resistentes e ricos em albumina.
O desenvolvimento embrionário dos anelídeos é típico de protostomados espirálicos, com ovo telolécito, clivagem espiral e holoblástica (levemente modificada nos clitelados), gastrulação por invaginação ou epibolia, e a mesoderme surgindo por esquizocelia. A metamorfose da larva em juvenil inclui o processo de crescimento teloblástico, com o alongamento do corpo por acréscimo gradual de segmentos a partir da zona de crescimento posterior (segmentos anteriores mais antigos nos adultos).
O monofiletismo dos anelídeos não é questionado, sendo suportado por sinapomorfias morfológicas, como a presença do corpo segmentado com compartimentos celômicos pares em cada segmento, e a as cerdas no padrão anelidiano, recobertas por β-quitina e unidas por proteínas esclerosadas. Entretanto, as relações internas do grupo ainda permanecem obscuras.
Recentemente, alguns táxons que eram considerados filos à parte foram incluídos em Annelida — Echiura, Sipuncula e Pogonophora. Mesmo com morfologias bastante diferenciadas, eles foram considerados anelídeos altamente modificados. Assim, a taxonomia de Annelida vem sofrendo modificações bastante significativas, especialmente com a inclusão de dados moleculares e análises filogenômicas. O conhecimento sobre as relações dentro do filo permanecem sendo motivo de debates, dificultando o estabelecimento de uma classificação linneana segura.
É artificial a tradicional classificação baseada em morfologia, que dividia os anelídeos em duas classes, Polychaeta e Clitellata, a última incluindo as subclasses Oligochaeta e Hirudinea (por vezes tratadas como classes separadas). Análises recentes apontam hirudíneos como um grupo monofilético que se originou dentro de oligoquetos, que, por sua vez, é um grupo interno posicionado nos poliquetas; ou seja, nesse contexto, Polychaeta seria parafilético e sinônimo de Annelida.
A hipótese mais atual aponta para Oweniidae, Mageloniidae, Chaetopteridae, Amphinomidae e Sipuncula, táxons de morfologias aberrantes, como parte da radiação basal dos anelídeos, com os representantes restantes divididos em dois grupos bem sustentados e caracterizados de acordo com seu estilo de vida. O clado Errantia é formado por espécies errantes, mais ativas e de corpos homônomos, geralmente predadoras; já o clado Sedentaria inclui as espécies mais sedentárias, heterônomas e menos vágeis, com dieta à base de microfagia. O tradicional clado Clitellata, no entanto, é recuperado como monofilético, sendo incluído dentro de Sedentaria, mas Oligochaeta é parafilético, já que a linhagem das sanguessugas surge dentro dos oligoquetas.
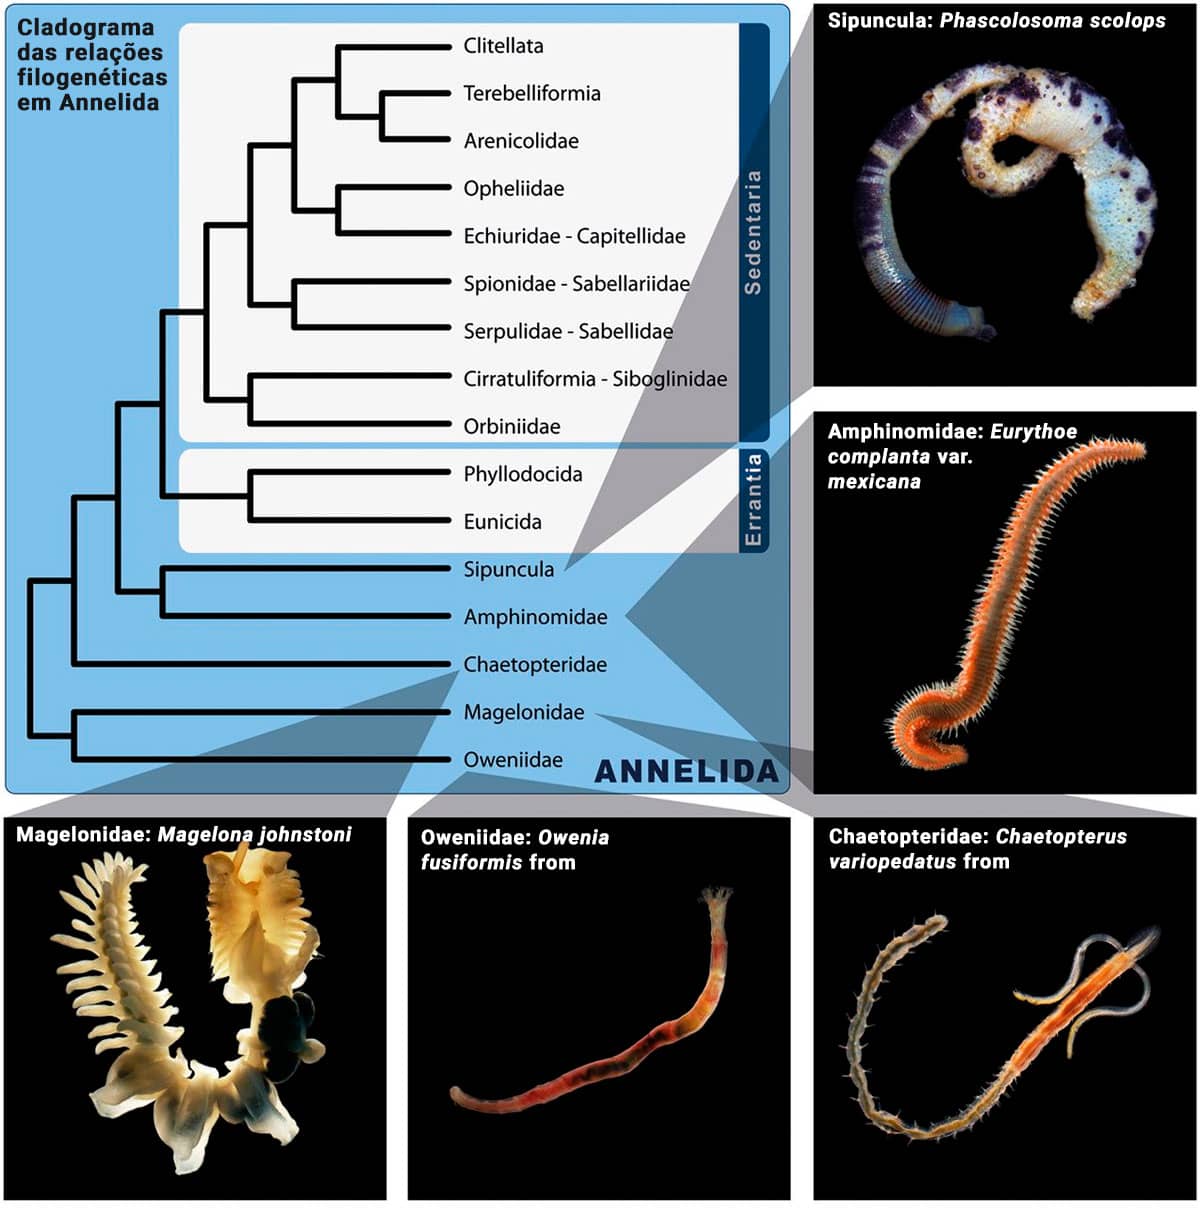
Embora poliquetas e oligoquetas não sejam monofiléticos, a tradicional divisão de anelídeos ainda é muito utilizada em livros-texto. A seguir, veja a caracterização das tradicionais classes de anelídeos. Os clados parafiléticos estão entre aspas.
Vermes marinhos, errantes, tubícolas e escavadores, poucas espécies são de água doce; tronco com numerosas cerdas; parapódios desenvolvidos; corpo homônomo ou heterônomo; prostômio e peristômio com órgãos sensoriais ou grandes estruturas tentaculares para alimentação e trocas gasosas; região anterior do tubo digestivo frequentemente modificada em faringe estomodeal eversível (probóscide), algumas vezes armadas com mandíbulas quitinosas; estruturas reprodutoras simples, gônadas temporárias; sem clitelo; maioria dioica; desenvolvimento indireto, com larva trocófora.
Minhocas e sanguessugas, terrestres e de água doce, poucas espécies são marinhas; sem parapódios; cerdas reduzidas ou ausentes; hermafroditas, com sistema reprodutor complexo e gônadas permanentes; com clitelo; desenvolvimento direto.
É importante ter em mente que essa classificação é artificial, sendo mantida apenas para fins didáticos, como é o caso de outros grupos, como crustáceos e répteis.
Para desbloquear o próximo módulo, é necessário que você responda corretamente a uma das seguintes questões:
Clique aqui e retorne para saber como desbloquear.
Distinguir as características morfofuncionais e os padrões evolutivos do filo Mollusca
O filo Mollusca, com aproximadamente 100 mil espécies, é o segundo mais diverso de Metazoa, atrás apenas dos artrópodes. Seus membros são caracterizados por serem animais bilaterais triploblásticos, protostomados, de corpo mole e com celoma não metamérico, restrito a certas partes do corpo, sendo a principal cavidade corporal a hemocele. A característica mais marcante, entretanto, é a presença da concha, com sua grande variedade de formas, cores e funções.
Moluscos são predominantemente marinhos, mas muitos ocuparam ambientes de água doce, como bivalves e caramujos, e até mesmo terrestres, como caracóis e lesmas. Com isso, não é de estranhar a enorme diversidade de formas, hábitos alimentares e modos de vida, que incluem desde predadores e herbívoros até endoparasitas, de formas sésseis e vagarosas até nadadores velozes, de espécies minúsculas, com menos de 1 milímetro, até indivíduos gigantescos, como a lula-gigante, com 18 metros e quase 450 quilogramas. O grupo também se destaca pela grande importância econômica e sanitária, com muitas espécies usadas na alimentação (e.g., lulas, polvos, vieiras, caramujos), no comércio de pérolas secretadas por ostras e conchas, e o fato de alguns caramujos serem hospedeiros intermediários de doenças tropicais (e.g., esquistossomose, fasciolose).
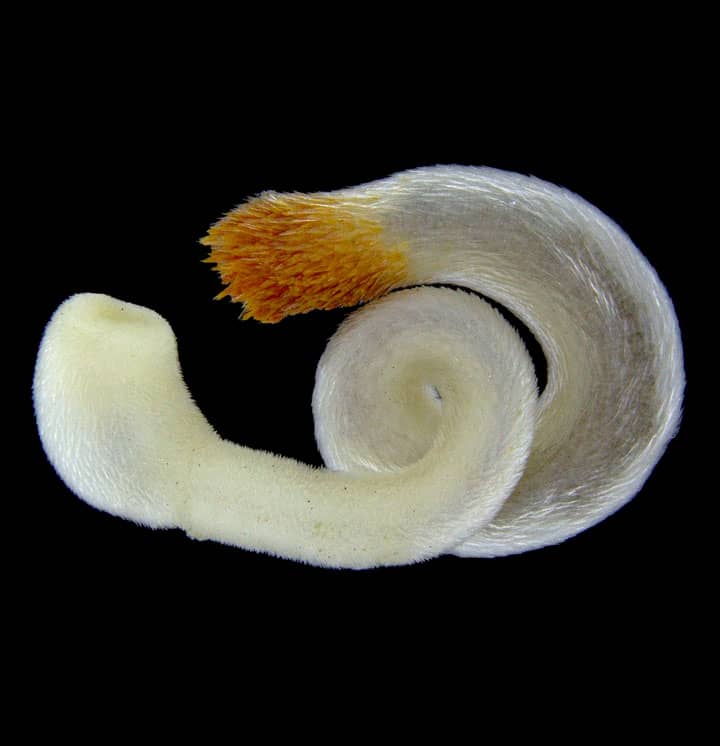
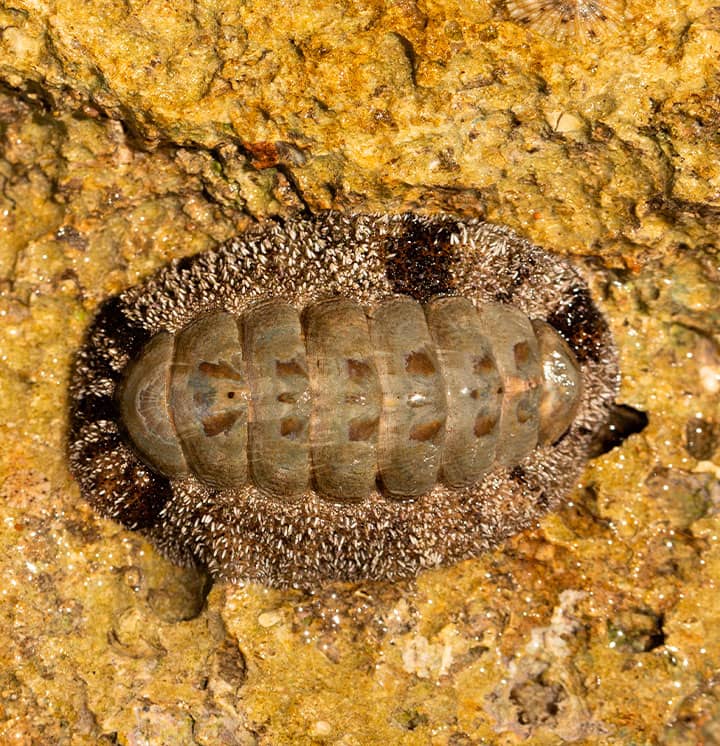
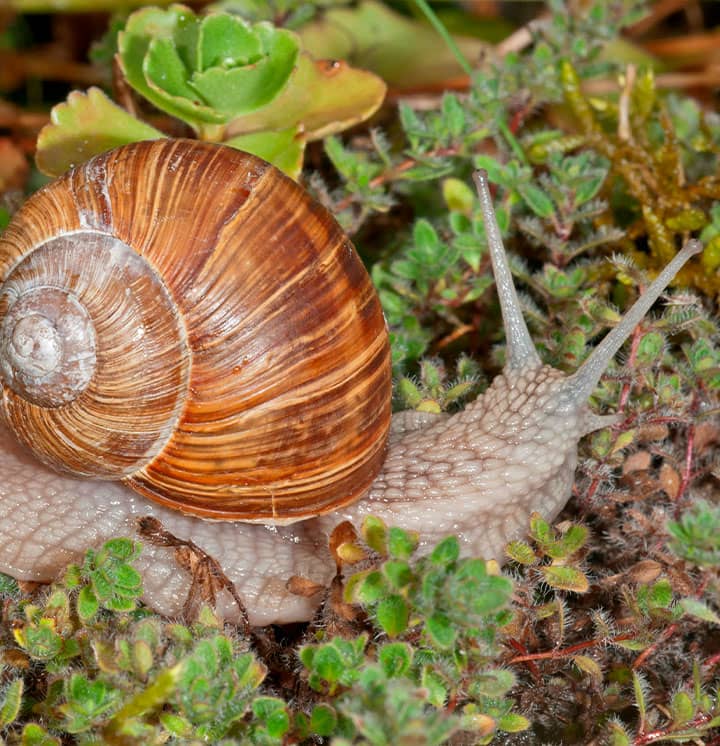
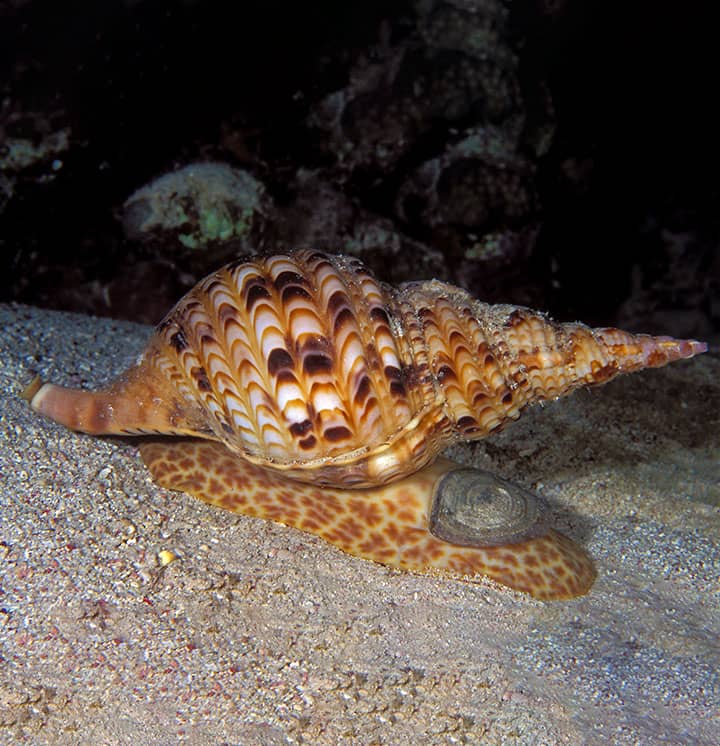
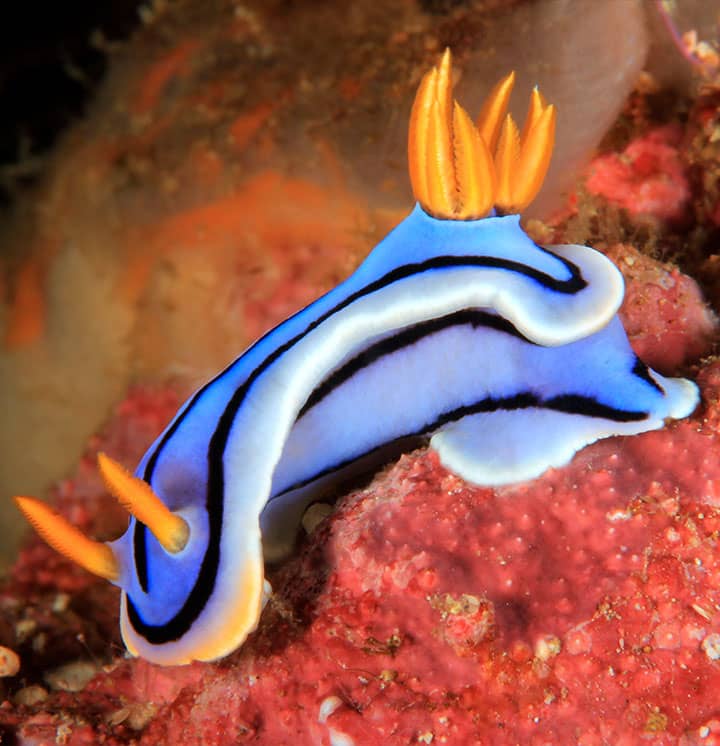
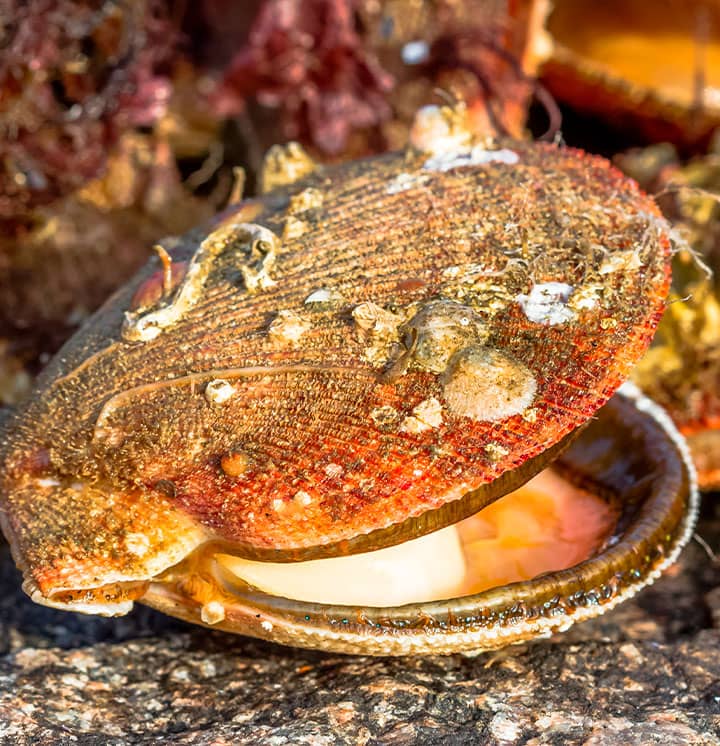
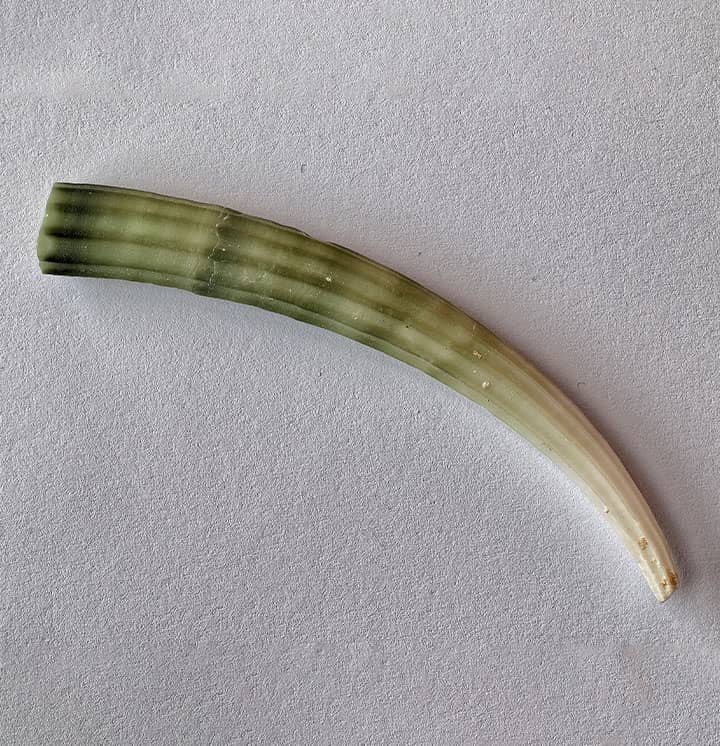
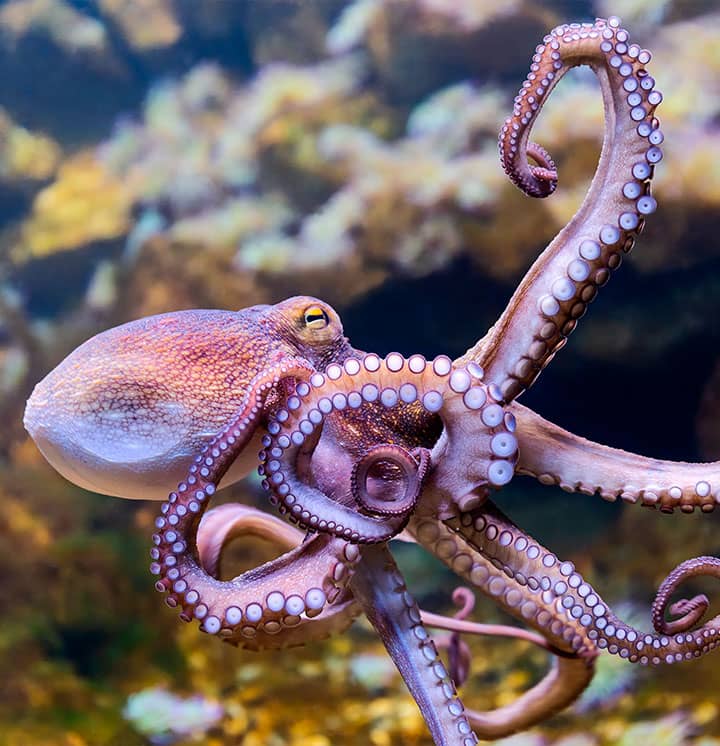
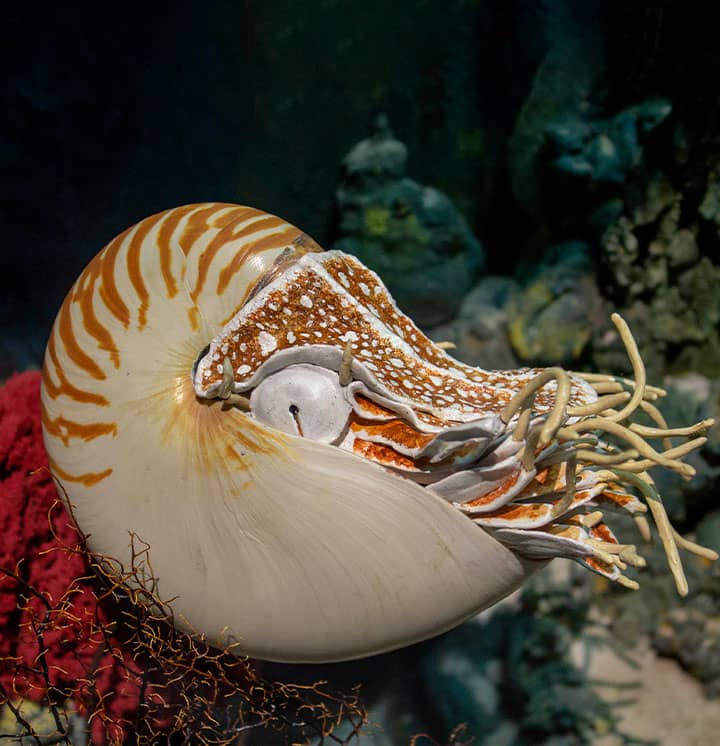
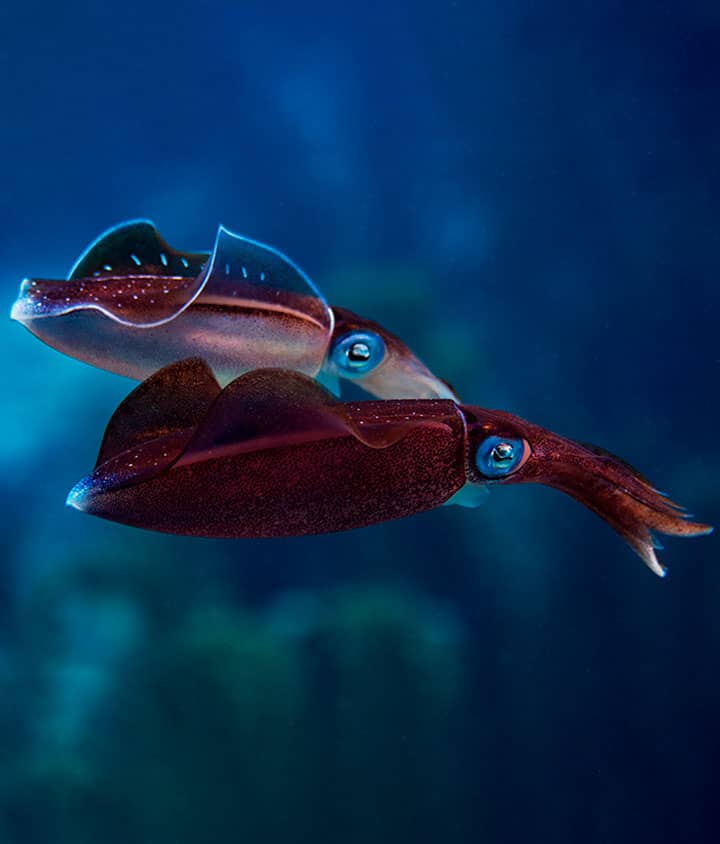
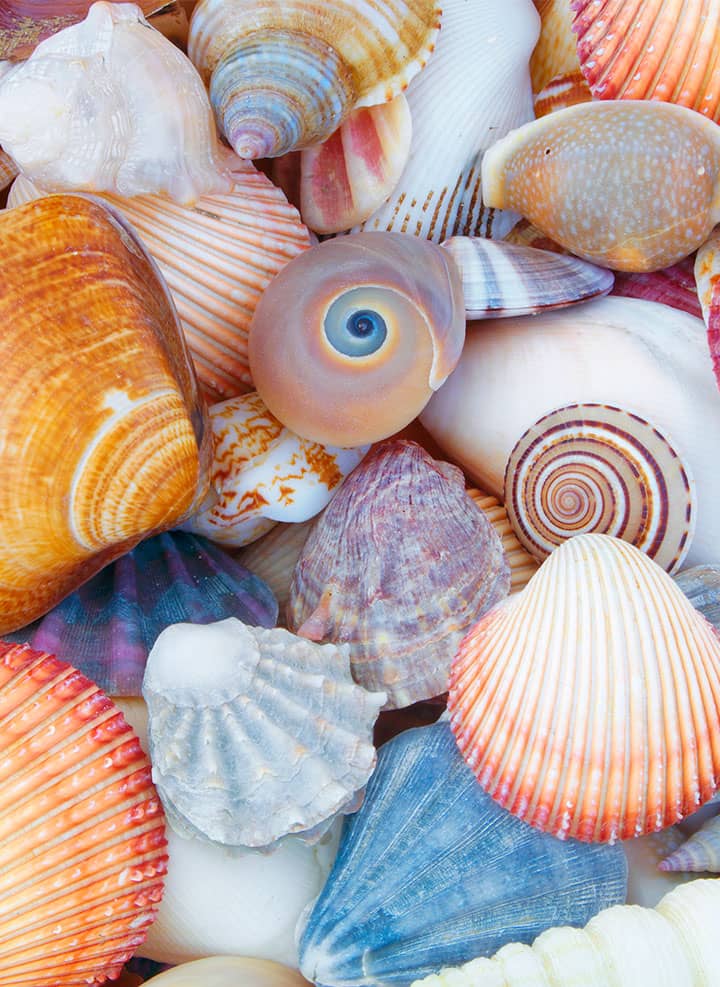
Atualmente existem oito classes bastante distintas morfologicamente: Caudofoveata e Solenogastres (aplacóforos, formas vermiformes sem conchas), Polyplacophora (quítons), Monoplacophora (lapas), Gastropoda (caracóis, lesmas e lesmas-do-mar), Bivalvia (ostras, vieiras, mariscos e mexilhões), Scaphopoda (dentes-de-elefante) e Cephalopoda (polvos, lulas e náutilos). Abaixo, exemplificamos a diversidade desse grupo:
Se você olhar um caramujo, um polvo e uma ostra, certamente terá dificuldade de encontrar semelhanças entre eles. Apesar de grande diversidade de formas, algumas características são comuns em quase todos os moluscos, sendo interpretadas como ancestrais para o filo. O plano básico corporal é formado por uma cabeça anterior, pela massa visceral, que contém os órgãos internos, e pelo pé muscular e manto.
Com exceção dos aplacóforos, cujo pé está restrito a um sulco ventral, o pé é bem desenvolvido e assemelha-se a uma sola rastejadora ventral, recoberta por epitélio ciliado e glândulas secretoras de muco, que auxiliam no deslizamento no substrato por meio de ondas de contração muscular propagadas de trás para frente ou vice-versa. Vários pares de músculos retratores pediosos se estendem da superfície interna da concha ao pé, aproximando essas estruturas quando se contraem.
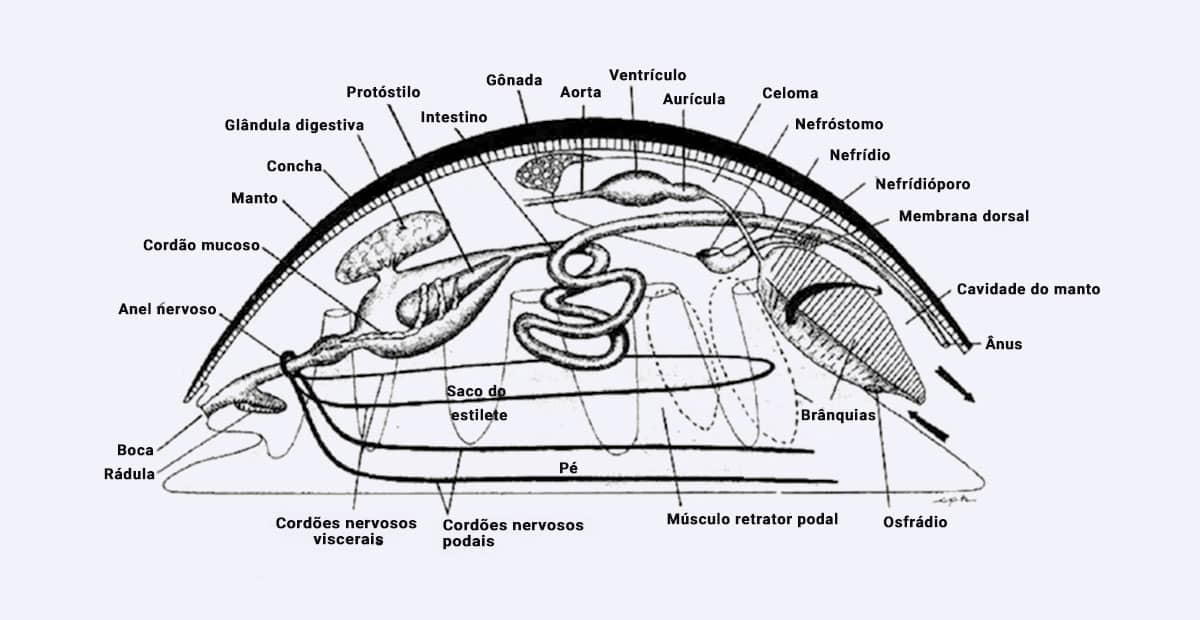
No entanto, muitas modificações nesse padrão ocorrem. Em bivalves, animais de pouca mobilidade, o pé é achatado, em forma de lâmina, sendo usado por espécies infaunais para ancoragem e escavação no substrato mole em ação conjunta do fluido celômico e dos músculos pedais retratores e protratores. Em bivalves epifaunais, que se fixam em substratos duros cimentando a concha ou por fios do bisso (feixes filamentosos secretados por glândulas pedais), o pé pode estar reduzido.
Em cefalópodes, animais de grande mobilidade, o pé é modificado nos braços e tentáculos, usados para manipular presas e agarrar no substrato. Em lulas e sibas, o corpo é hidrodinâmico, podendo ter nadadeiras laterais. A natação é feita por propulsão a jato, com a água sendo expilada rapidamente via sifão móvel muscular da cavidade do manto por contração muscular. Já os polvos são bentônicos, reptando no fundo dos oceanos com auxílio dos tentáculos dotados de ventosas aderentes. A propulsão é utilizada apenas para fuga de predadores.
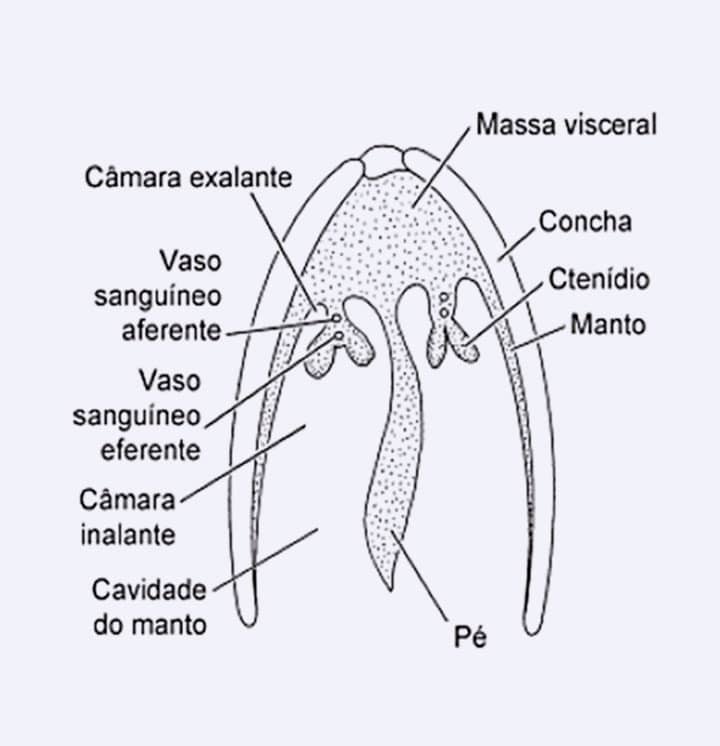
O manto (ou pálio) é uma área secretora ampla do epitélio dorsal posicionada sobre a massa visceral, oriunda de dois lobos embrionários que se estendem e formam uma prega periférica que origina a cavidade do manto, um espaço contínuo com a água circundante entre o manto e a parede dorsal. Nesse local, estão as brânquias (ctenídeos) e as aberturas terminais de diversos sistemas; assim, muitos processos importantes ocorrem lá dentro.
A circulação é promovida por ação ciliar dos ctenídeos ou muscular, como nos cefalópodes, com a água entrando ventralmente (corrente inalante), passando pelas brânquias, e saindo dorsalmente (corrente exalante), passando antes pelos poros excretores e pelo ânus. Esse processo carrega os restos metabólicos e alimentares para fora da cavidade, evitando autopoluição da cavidade (e.g., dejetos retidos nas brânquias). Os gonóporos também se abrem nessa cavidade, na corrente exalante.
No padrão ancestral, a cavidade era posterior e prolongada anteriormente, mas nos grupos atuais diversas modificações ocorreram, e tal cavidade é anterior na maioria dos gastrópodes, provendo espaço para retração da cabeça e do pé, amplas e laterais nos bivalves, com papel fundamental na alimentação filtradora. O epitélio externo do manto reveste internamente a concha, secretando via glândulas da concha as proteínas e o carbonato de cálcio utilizados na sua construção; já o epitélio interno recobre a cavidade do manto, é ciliado e secreta muco. A concha cresce pela adição de material orgânico e mineral, secretado pela margem externa do manto.
Abaixo do epitélio, existem três camadas musculares: externa circular, mediana diagonal e interna longitudinal. O celoma é reduzido aos sistemas excretor, reprodutor e a cavidade pericárdica, que contém o coração. A função de sustentação como esqueleto hidrostático é assumida pela hemocele, uma ampla cavidade secundária que possui seios sanguíneos.
Quando você pensa em moluscos, a concha calcária — e sua grande rigidez — é uma das primeiras estruturas que vêm à tona, certo? Na maioria dos casos, ela recobre quase todo o corpo do animal, protegendo-o de predadores e danos mecânicos. A concha produzida pelo manto consiste em três camadas principais. O perióstraco é uma fina camada externa de origem proteica, constituída por conchiolina. Já as duas camadas calcárias mais internas, compostas por carbonato de cálcio depositado em matriz orgânica são a prismática, mais grossa e com textura de giz, e a nacarada (madrepérola), com brilho perolado e que reveste internamente a concha.
Ao comparar quítons, caramujos, ostras e polvos, você pode observar que a concha dos moluscos varia acentuadamente em tamanho, forma e coloração. As cores vibrantes de algumas conchas são resultado de depósitos de subprodutos metabólicos e as ornamentações estão relacionadas aos habitats em que os animais vivem (e.g., espinhos ajudam na estabilidade em substratos moles, conchas baixas auxiliam na estabilidade em ambientes de correnteza etc.).
Nos aplacóforos, não há concha, apenas espículas calcárias no tegumento escamoso. Outros grupos podem ter conchas com uma, duas ou oito valvas (placas). Os poliplacóforos, como o nome sugere, possuem oito valvas dorsais unidas por dentes e apófises, que podem ser parcialmente ou totalmente recobertas pelo manto. Bivalves possuem conchas com duas valvas articuladas dorsalmente pelo ligamento da charneira, fechadas por ação de músculos adutores lisos que estiram o ligamento.
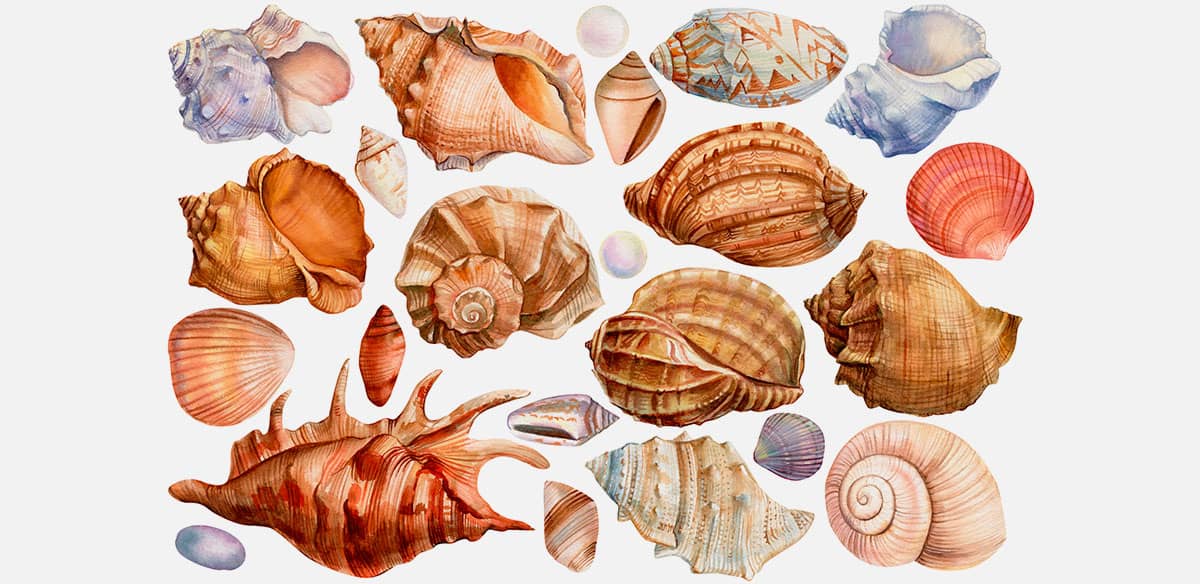
Conchas com apenas uma valva podem ser encontradas em monoplacóforos, em forma de lapa, escafópodes, em forma de dentálio, e gastrópodes, com grande variedade de formas, sendo as conchas coniespiral ou planiespiral enroladas em torno de um eixo central, a columela.
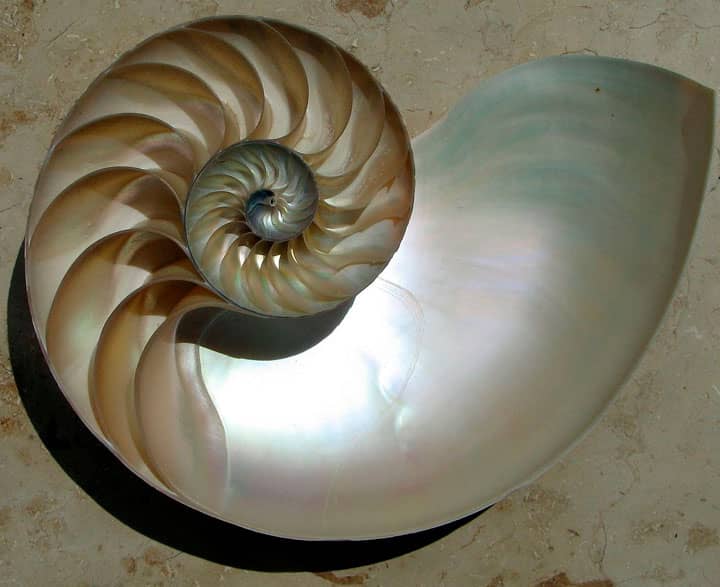
Em cefalópodes, existem dois padrões: nos coleoides, a concha sofreu redução e internalização, adquirindo forma de pena, caso das lulas e sibas, ou se perdeu completamente, como nos polvos; nos nautiloides, a concha é externa e planispiral, sem perióstraco e dividida em câmaras com septos transversais, com o animal ocupando a primeira delas.
Sem dúvida a concha desempenhou papel fundamental na evolução dos moluscos. Apenas nos aplacóforos, grupos mais basais, elas estão ausentes, sendo uma característica plesiomórfica. Nos quítons, a concha apresenta composição e estrutura diferenciadas, mas no restante das classes ela apresenta suas três camadas características e homólogas. Mesmo no estágio larvar típico dos moluscos (larva véliger), há uma protoconcha.
A concha forneceu a proteção necessária para que os animais forrageassem em busca de alimentos e ao mesmo tempo estivessem protegidos de predadores. Porém, devido a seu peso, ela limita os movimentos, tornando os moluscos muito vagarosos ou até mesmo sésseis, como alguns bivalves. No mais, a concha passou a exercer outras funções em alguns grupos, como auxiliar na escavação e perfuração de substratos (e.g., bivalves teredos) e prover equilíbrio, como em grupos pelágicos com conchas em forma de quilhas.
Nos nautiloides, a concha é leve e dividida em câmaras internas, com o animal alterando a proporção de líquido e gás nessas câmaras por um cordão tecidual (sifúnculo) que controla a proporção de íons, ajustando a flutuabilidade.
A redução parcial ou total da concha, entretanto, ocorreu diversas vezes em diferentes linhagens de gastrópodes, como nas lesmas pulmonadas e opistobrânquios (lesmas marinhas), além dos cefalópodes.
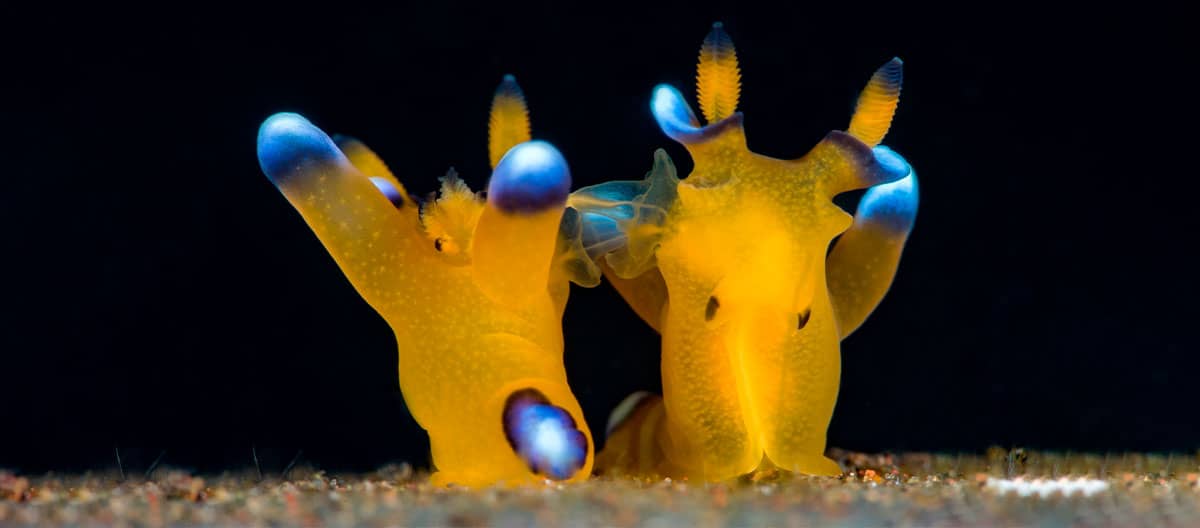
A formação da concha é bastante custosa e necessita de muito cálcio no ambiente. A perda de proteção é contrabalanceada pelo ganho de mobilidade, como nos cefalópodes. Além disso, a eliminação da concha requer o surgimento de mecanismos compensatórios, como nas lesmas marinhas que possuem substâncias tóxicas e forte coloração de advertência, ou das lesmas terrestres, que se enterraram parcialmente no solo para se proteger e evitar dessecação.
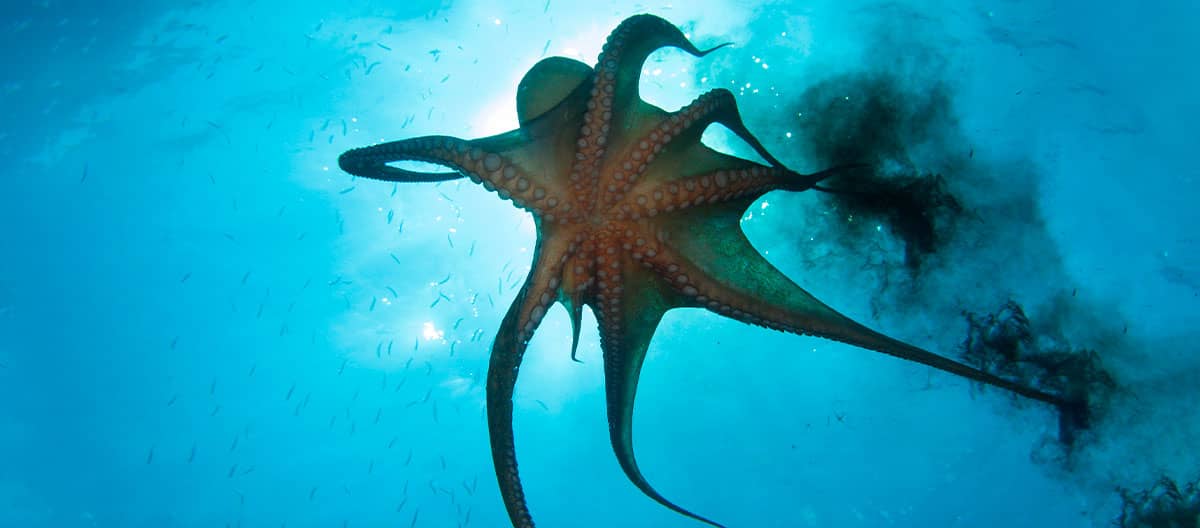
Um mecanismo de defesa muito conhecido dos moluscos é utilizado por cefalópodes coleoides, como polvos e lulas: há uma súbita formação de uma cortina de tinta para desnortear o predador, permitindo que o animal fuja rapidamente. Esse pigmento escuro à base de melanina (sépia) é de origem glandular e fica armazenado no saco da tinta, que desemboca no reto. Quando ameaçado, o cefalópode libera a tinta pelo ânus.
O trato digestivo é completo e consiste nas regiões anterior (boca, cavidade oral e faringe), mediana (esôfago, estômago, cecos digestivos) e posterior (reto e ânus), sendo o primeiro e o terceiro cobertos por cutícula.
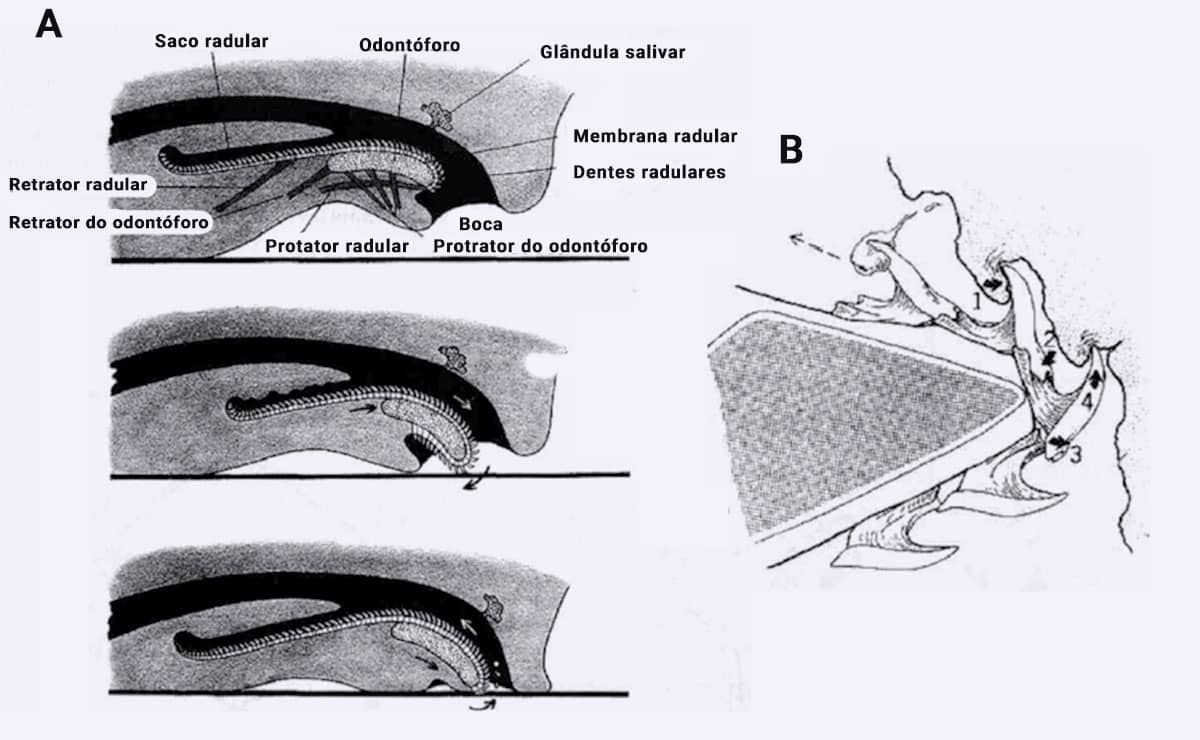
A boca conduz a uma cavidade oral, onde está o aparelho radular, composto por rádula, odontóforo, complexo muscular e o saco radular. A rádula é uma estrutura exclusiva dos moluscos, sendo um órgão linguiforme raspador composto por uma esteira móvel com fileiras de dentes quitinosos secretados continuamente no saco da rádula para repor os dentes perdidos (grande variação de número e forma, com até 250 mil dentes). A esteira está posicionada sobre o odontóforo cartilaginoso, sendo ambos protraídos da boca e movimentados pelo complexo muscular. Glândulas salivares secretam muco, que lubrifica a rádula e se mistura às partículas alimentares, formando um cordão mucoso que é transportado por cílios para o estômago. Em espécies herbívoras, parte da faringe pode estar modificada em uma moela muscular.
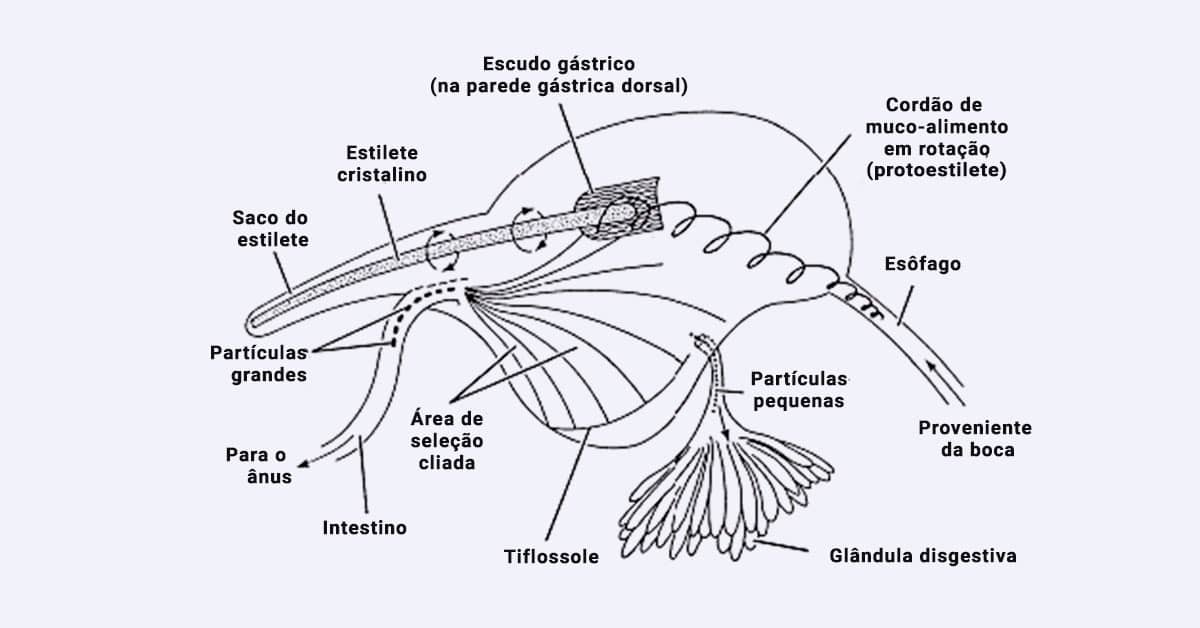
Outras regionalizações do trato digestivo de moluscos ocorrem no estômago, que inclui os cecos digestivos volumosos, chamados frequentemente de fígado ou glândulas digestivas. Eles armazenam o alimento e secretam enzimas que promovem a digestão extracelular no lúmen estomacal, mas também absorvem nutrientes intracelularmente.
Muitos moluscos (e.g., gastrópodes, bivalves) têm o epitélio da região anterior revestido por um escudo gástrico quitinoso, que protege a região contra abrasões, e uma região dorsal pregueada de seleção, que separa partículas digeríveis de minerais. Na região posterior, há o saco do estilete, com paredes ciliadas e que contém o estilete cristalino, composto por amilases digestivas. Ao ser girado pelos cílios do saco, ele auxilia no transporte do cordão mucoso para o interior do estômago e, ao se atritar contra o escudo gástrico, libera as amilases. O cordão é desfeito pela acidez local, liberando as partículas que serão selecionadas nas tiflossoles por tamanho (partículas menores vão para os cecos e maiores para o intestino). A abertura do ânus está localizada na cavidade do manto, próxima à corrente exalante.
Os hábitos e técnicas alimentares de moluscos são muito vastos e seriam necessárias muitas e muitas linhas para relatá-los com detalhes. Em resumo, os moluscos possuem dois padrões alimentares básicos, macrofagia e microfagia.
Grupos macrófagos possuem mandíbulas e rádulas bem desenvolvidas, usadas para obter e triturar o alimento. Aplacóforos possuem rádulas primitivas, sendo micrófagos depositívoros ou carnívoros de cnidários. Escafópodes selecionam partículas no substrato utilizando seus tentáculos (captáculos) com sulcos ciliados que conduzem o alimento até a boca, onde são macerados pela rádula. Monoplacóforos e poliplacóforos são pastadores de algas e organismos encrustados, raspando a superfície de rochas com a rádula (hábito alimentar primitivo dos moluscos). Cefalópodes são predadores ativos, capturando presas com os tentáculos e mordendo-as por meio de um bico córneo; a rádula é bastante reduzida, especialmente em polvos, podendo até mesmo estar ausente em lulas espirulídeas. Gastrópodes apresentam a maior variedade alimentar dentro do filo, com rádulas estruturalmente diferenciadas para cada tipo de alimentação. Ocorrem desde espécies que seguem o padrão básico raspador até predadoras e herbívoras de macroalgas e partes macias de plantas vasculares, no caso das espécies terrestres.
A microfagia suspensívora ocorre em alguns gastrópodes e na maioria dos bivalves. Nos gastrópodes pterópodes, a rádula é bem reduzida, servindo para recolher redes de muco com partículas aderidas, que podem ser secretadas em expansões e glândulas do pé (e.g., borboletas-do-mar e vermetídeos) ou na cavidade do manto (e.g., prosobrânquios errantes). Em bivalves, a rádula foi completamente perdida no início da diversificação do grupo, com os ctenídeos assumindo papel na alimentação.
Existem três grupos distinguidos por diferenças nas brânquias e modos de alimentação:
A subclasse Protobranchia inclui espécies que vivem enterradas no substrato não consolidado e possuem um par de ctenídeos bipectinados, que não são usados na alimentação — partículas são selecionadas no substrato com auxílio da probóscide labial.
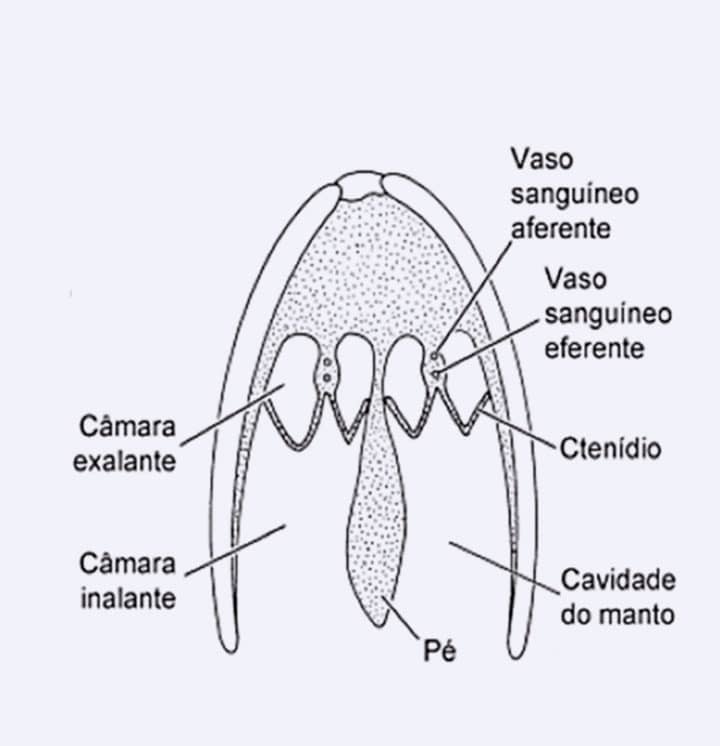
A subclasse Autobranchia inclui espécies com o padrão estereotipado da alimentação suspensívora dos bivalves, cujos ctenídeos foram ampliados, com as pectinas se tornando grandes lamelas que retiram partículas em suspensão da água que entra na cavidade do manto. Sulcos ciliados e cobertos por muco carregam as partículas até os palpos labiais, que descartam partículas maiores (pseudofezes) e conduzem as menores até a boca.
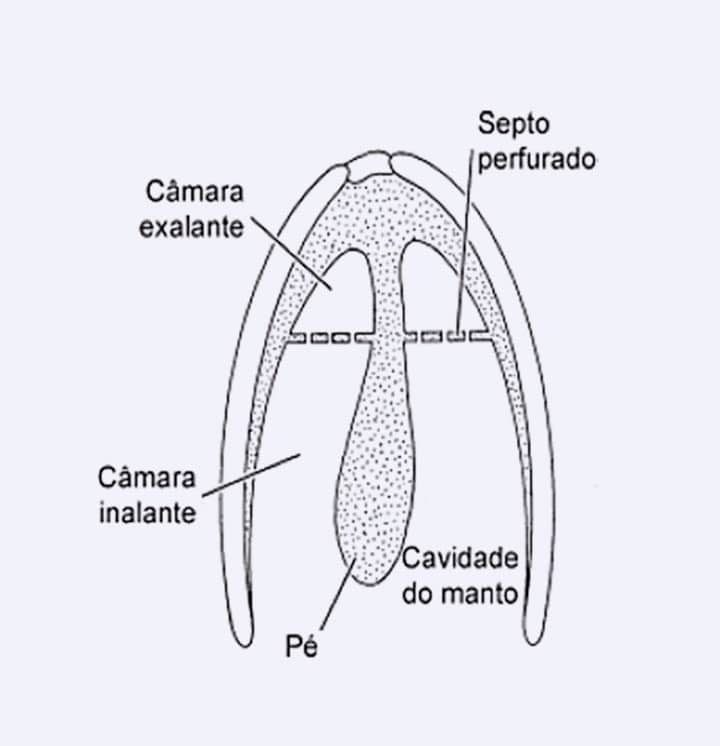
Por fim, os septibrânquios (ordem Poromyata, subclasse Autobranchia), um pequeno grupo que habita mares profundos, são carnívoros e perderam as lamelas do ctenídeo, transformando-as em um diafragma muscular perfurado, cuja contração causa a sucção da água para a cavidade do manto. As presas contidas na corrente, como microcrustáceos, são capturadas pelos palpos labiais. Esse padrão constitui uma reversão na direção da evolução alimentar dos bivalves.
Veja abaixo duas ilustrações que detalham a estrutura dos ctenídeos em bivalves:
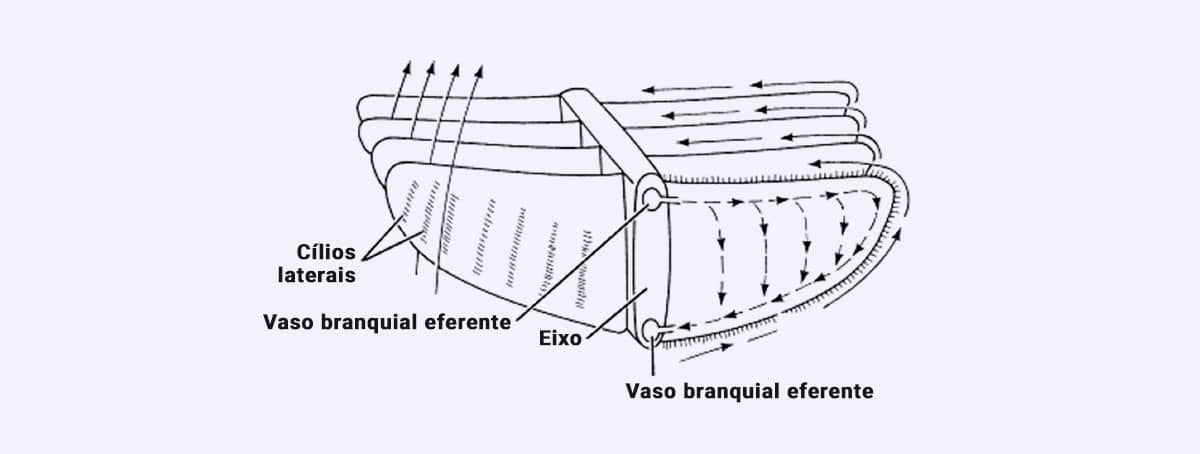
Seção transversal de brânquia filamentosa, padrão básico de moluscos e protobrânquios.
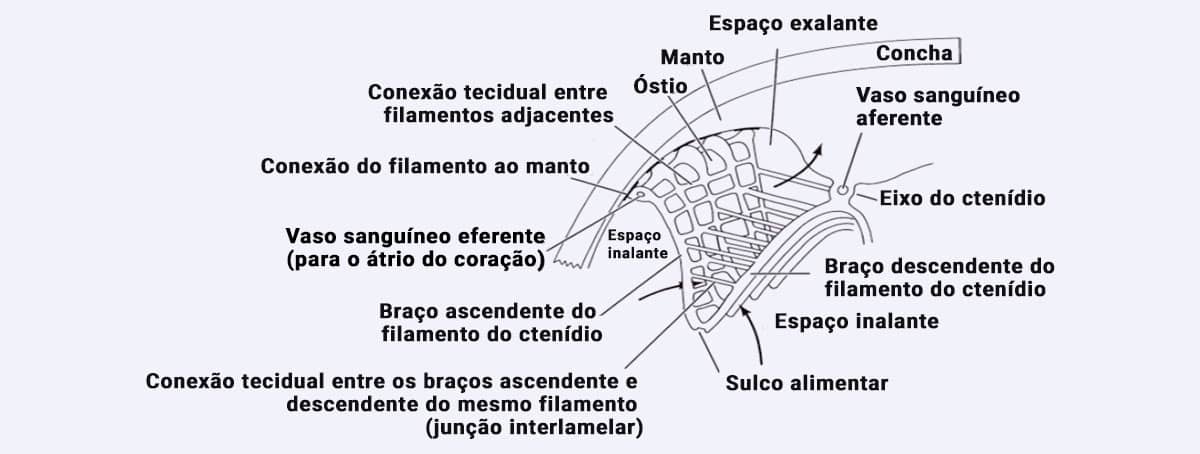
Seção transversal de brânquia lamelar usada na filtração de alimento em autobrânquios.
Devido a seu hábito alimentar, os bivalves constituem excelentes organismos bioindicadores e bioacumuladores, pois são capazes de acumular poluentes nos tecidos ao filtrar a água do mar, especialmente metais pesados. Com isso, eles demonstram grande importância ecológica, sendo capazes de transferir contaminantes para outros níveis tróficos, já que servem de alimento para muitos animais, incluindo o homem.
Diferentemente dos anelídeos, o sistema circulatório dos moluscos é aberto. O coração bombeador, localizado no interior do pericárdio celômico, possui um par de átrios e um ventrículo (variável em alguns grupos), de onde parte uma artéria anterior e uma posterior, que distribuem a hemolinfa para os seios da hemocele na cabeça, no pé e na massa visceral, banhando os órgãos internos. A hemolinfa, agora pouco oxigenada, é drenada para os vasos aferentes ctenidiais, que a conduzem aos ctenídios para realizar as trocas gasosas, devolvendo-a oxigenada para os átrios do coração via vasos eferentes ctenidiais. A hemolinfa contém muitos amebócitos, bem como o pigmento respiratório hemocianina.
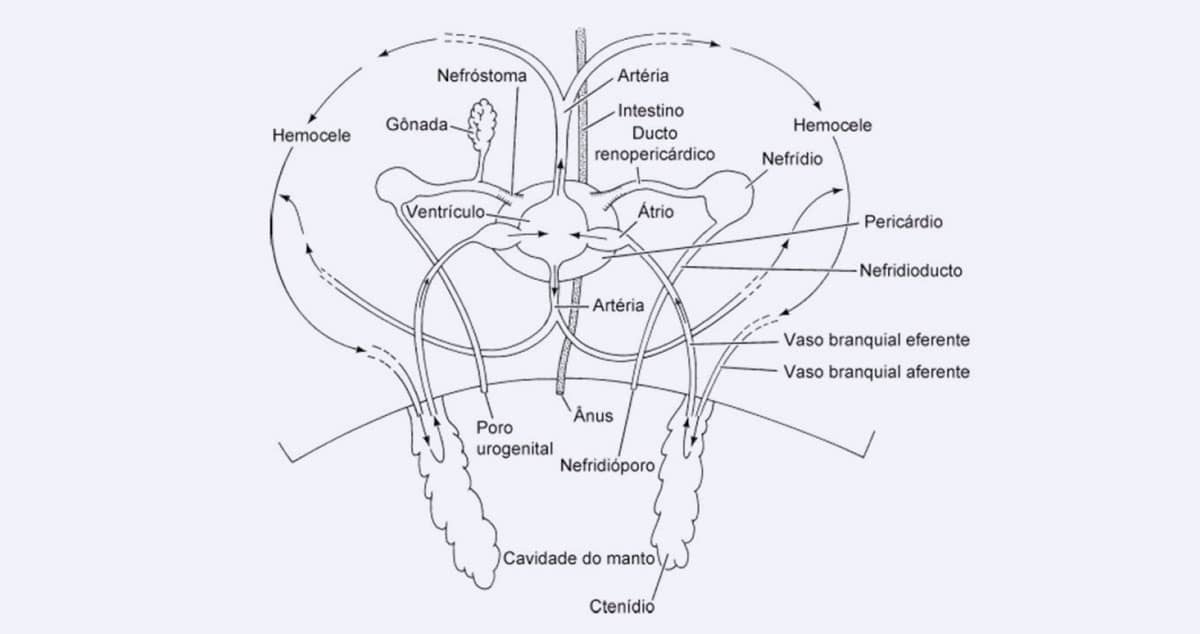
Diferentemente de sistemas fechados, a circulação aberta torna o metabolismo mais lento, já que o sangue perde pressão ao sair dos vasos sanguíneos. Esse tipo de sistema atende bem a demanda de animais vagarosos como os moluscos. No entanto, em cefalópodes, animais com estilo de vida ativo, esse sistema padrão não supre suas demandas metabólicas. Para solucionar esse problema nos cefalópodes, seu sistema circulatório tornou-se totalmente fechado e com estruturas bombeadoras secundárias, como corações branquiais acessórios.
As trocas gasosas são realizadas principalmente por um par de ctenídios localizados no teto da cavidade do manto. Cada ctenídio tem um eixo central com uma lamela de cada lado e é coberto por cílios, responsáveis pela corrente de água na cavidade do manto. A troca ocorre em um sistema de contracorrente, no qual a hemolinfa circula através dos filamentos branquiais da região exalante para a inalante, enquanto a corrente de água respiratória move-se em sentido contrário, aumentando a eficiência na extração de oxigênio da água.
Grupos que perderam os ctenídeos secundariamente realizam trocas diretamente pelo tegumento (troca cutânea) ou pela parede do manto, que é muito vascularizada. É o caso dos gastrópodes pulmonados terrestres, nos quais a cavidade do manto é totalmente fechada e sem ctenídios, ineficiente para respiração em ambientes aéreos, recebendo ar atmosférico por uma abertura lateral direita (pneumóstoma). A ação muscular do assoalho do manto gera a entrada e a saída de ar.
O sistema excretor é formado pelo complexo cardiorrenal. Os metanefrídeos são chamados de rins devido ao aspecto saculiforme. Os nefróstomas abrem-se na cavidade pericardial e os nefridióporos, próximos à corrente exalante da cavidade do manto. A reabsorção seletiva ocorre nos dutos renopericardiais. O número de metanefrídeos varia de um a sete pares, podendo estar ausentes em grupos mais derivados.
Moluscos aquáticos são osmoconformadores e excretam principalmente amônia, com as espécies de água doce eliminando uma urina hiposmótica devida à reabsorção de sais; moluscos terrestres excretam ureia, fundamental na economia de água devido à evaporação pelo corpo e ao alto gasto na formação do rastro de muco. Cefalópodes possuem sacos renais preenchidos por líquido, pelos quais uma veia branquial penetra e promove numerosas evaginações na parede (apêndices renais), onde as excretas são filtradas, aumentando a eficiência do sistema excretor. Os sacos renais são habitados por diversos comensais e parasitas (e.g., rombozoários, trematódeos, nematódeos etc.).
O sistema nervoso é composto por um anel nervoso formado por três gânglios e posicionado ao redor do esôfago, de onde parte um par de cordões nervosos ganglionares longitudinais, sendo um pedioso (sola pedal) e um visceral (massa visceral e manto), conectados por comissuras laterais.
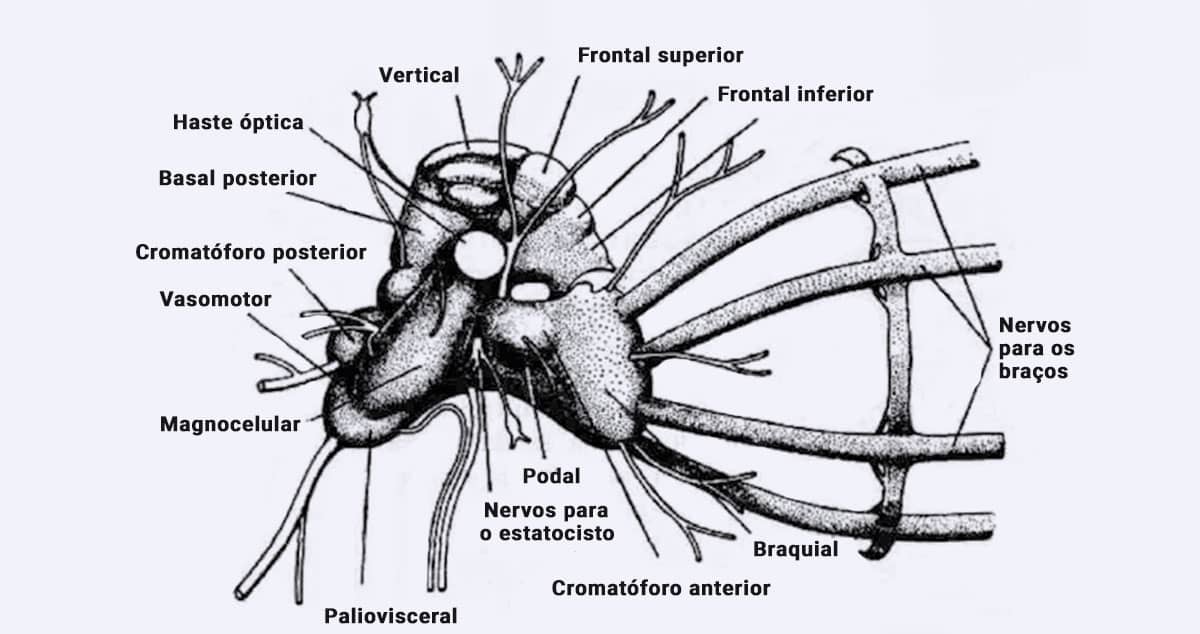
Nas classes mais apicais, pode haver variação no fusionamento dos gânglios do cordão. Em bivalves, não há uma concentração de receptores sensoriais e de células nervosas, não havendo uma cabeça bem desenvolvida. Já nos cefalópodes, a concentração ganglionar atinge seu grau máximo, com grande cefalização, com os gânglios deslocados e concentrados dentro de lobos de um cérebro volumoso, geralmente envolto em um crânio cartilaginoso. Eles apresentam o maior e mais complexo cérebro dentre os invertebrados, com centros ligados ao aprendizado e à memória em longo prazo. Fibras motoras gigantes de ação rápida ocorrem em alguns grupos.
Com exceção dos aplacóforos, as estruturas sensoriais mais comuns são tentáculos cefálicos quimiorreceptores e/ou fotorreceptores, estatocistos, principalmente na sola pedal, e osfrádios, que se localizam sobre ou ao lado das brânquias.
São áreas de epitélio sensorial que funcionam no monitoramento da qualidade de partículas que entram na cavidade do manto junto com a corrente de água, sendo mais desenvolvidos em espécies bentônicas.
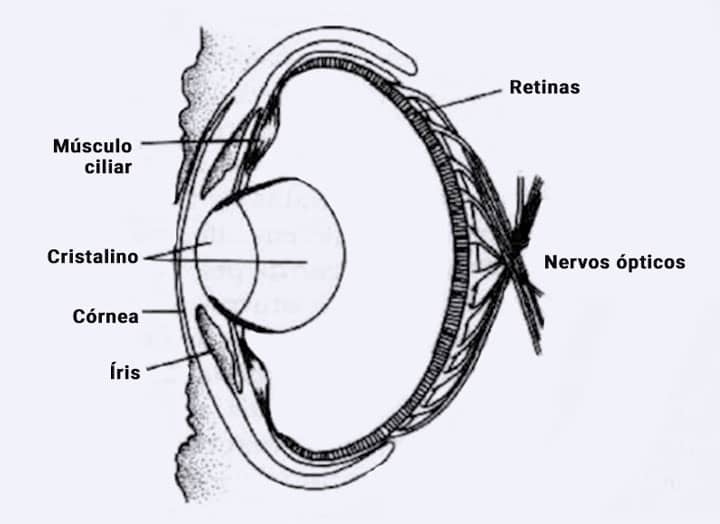
A maioria dos gastrópodes apresenta um ou dois pares de tentáculos cefálicos de função tátil ou quimiorreceptora, alguns com olhos no ápice. Bivalves têm órgãos sensoriais e ocelos na prega mediana da borda do manto. Já os quítons possuem estetos sensoriais, que podem incluir ocelos, ao longo da superfície dorsal das placas da concha. Mas novamente é nos cefalópodes que os órgãos sensoriais estão mais desenvolvidos, principalmente os olhos, que são extremamente avançados, dotados de lentes córneas, cristalino e íris, que lembram o padrão dos vertebrados, sendo a visão o principal sentido no grupo.
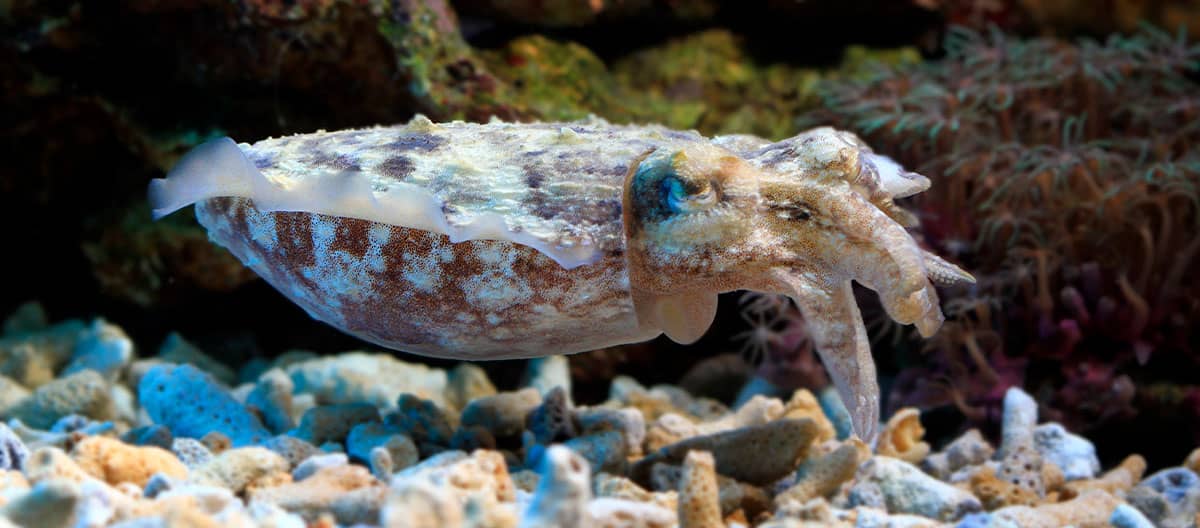
Os cefalópodes possuem na cabeça e nos tentáculos um sistema análogo à linha lateral dos peixes, com células quimiossensoriais capazes de detectar movimentação de presas. Outra característica interessante é a presença abundante de cromatóforos na derme, que, sob controle nervoso e hormonal, levam à mudança instantânea de cores, incluindo barras, pontos e listras, muito usadas na comunicação e camuflagem.
Os moluscos fazem reprodução sexuada, sendo a maioria dioica, com fertilização externa ocorrendo na água do mar e desenvolvimento indireto. Tipicamente possuem um ou dois pares de gônadas permanentes (cefalópodes e muitos gastrópodes com apenas uma gônada), que liberam gametas no celoma pericardial, onde são transportados via nefridióporos, ou diretamente via gonóporos, ambos se abrindo na corrente exalante da cavidade do manto.
Nas espécies marinhas, o desenvolvimento indireto origina uma larva trocófora similar à dos anelídeos, seguida de uma larva véliger (ausente em aplacóforos e quítons), exclusiva dos moluscos. Ela é caracterizada por possuir estruturas similares às dos adultos, como pé, protoconcha e manto, e pelo véu bilobado e ciliado oriundo do prototroco da trocófora, utilizado na natação e captura de partículas para alimentação. Após essa fase, a larva fixa-se em substrato adequado para desenvolvimento do adulto, onde sofre a metamorfose e dá origem ao juvenil.
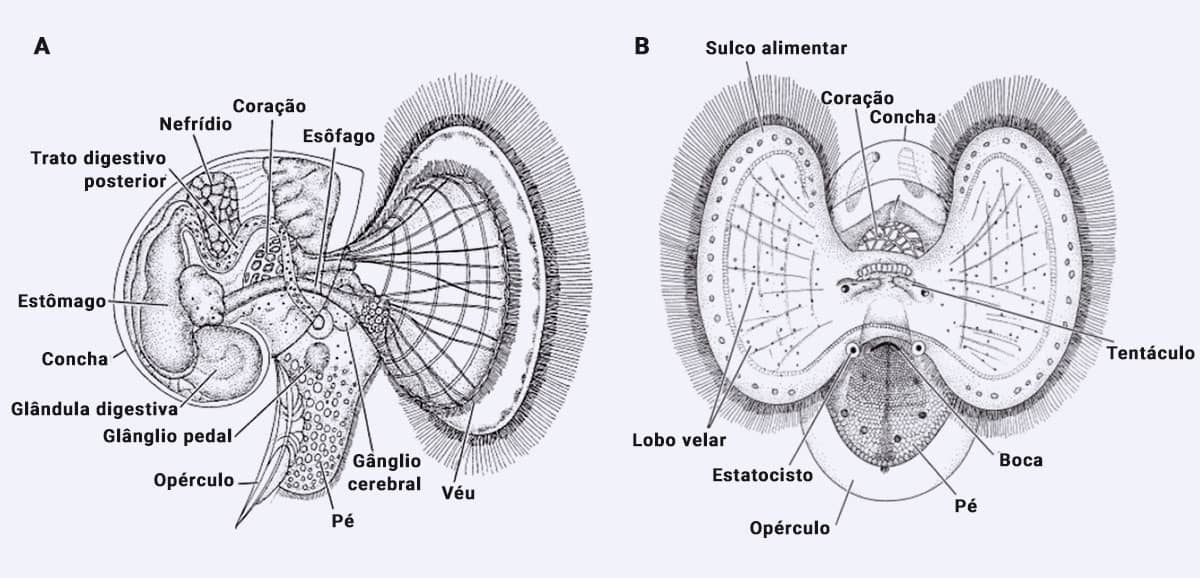
Mudanças nesse padrão ocorrem nas distintas linhagens. Hermafroditismo ocorre em Solenogastres, muitos gastrópodes e alguns bivalves, como ostras e teredos. Espécies terrestres e grande parte das dulcícolas, além dos cefalópodes, têm desenvolvimento direto. Alguns bivalves apresentam a larva véliger modificada, como ganchos adaptados para o ectoparasitismo de peixes (larva gloquídeo). Já nos cefalópodes, a fertilização é interna, com os machos formando um espermatóforo que é introduzido na abertura genital feminina posicionada na cavidade do manto por meio de um braço diferenciado (hectocótilo), dotado de depressões e ventosas especiais; em nautiloides, quatro braços formam o órgão intromitente (espádice).
O ritual copulatório de muitos moluscos é complexo e pode ser violento, como nos cefalópodes, envolvendo múltiplas mudanças de cores e uso do bico córneo. Além disso, o cuidado parental nos polvos é intenso, com a fêmea aerando e defendendo os ovos constantemente por meses, sem se alimentar, morrendo após a eclosão dos filhotes.
A clivagem geralmente é espiral holoblástica, modificada em meroblástica nos cefalópodes. A blástula em desenvolvimento apresenta células em seu polo animal com um típico arranjo em cruz, seguida de gastrulação por invaginação (ovos pequenos) ou epibolia (ovos grandes, ricos em vitelo). A mesoderme origina-se por esquizocelia. A gástrula evolui para uma larva trocófora, considerado um estágio ancestral, com a interposição de mais um estágio larval livre-natante, a larva véliger, um caráter derivado dos moluscos. Entretanto, em muitos grupos, a larva trocófora pode estar suprimida, caso dos gastrópodes, exceto nos arqueogastrópodes mais basais, onde ela se mantém.
A origem dos moluscos ainda é enigmática, mas os primeiros fósseis com pequenas conchas mineralizadas relacionados aos moluscos datam do início do Cambriano, apesar de alguns autores apontarem para uma origem ainda anterior.
Existem muitas hipóteses sobre a origem dos moluscos, mas dentre as principais pode-se destacar:
I. Moluscos seriam oriundos de um ancestral marinho acelomado semelhante aos platelmintos.
II. Moluscos seriam oriundos de um ancestral celomado e segmentado, semelhante a um anelídeo.
III. Moluscos seriam oriundos de um ancestral celomado e não metamérico.
O ancestral dos moluscos, no entanto, provavelmente tinha manto, rádula e sola pedal. Apesar das dúvidas acerca do relacionamento dos moluscos em Spiralia, como visto na introdução deste estudo, o monofiletismo do filo parece ser inquestionável. As principais sinapomorfias incluem a redução do celoma e o desenvolvimento de sistema circulatório hemocélico aberto; parede dorsal do corpo formando um manto capaz de secretar escleritos ou concha calcária; músculos da parede ventral formando um pé musculoso; rádula; e coração compartimentado com átrios e ventrículo.
O manto glandular e sua cavidade representam uma característica com a maior plasticidade e capacidade adaptativa, comparando-se a qualquer outra estrutura dos moluscos. O manto é responsável pela secreção da concha e abriga estruturas fundamentais para o funcionamento sistêmico do animal. Ao observarmos vários moluscos, percebemos que a cavidade do manto está modificada de forma distinta entre eles; por exemplo, nas espécies terrestres funciona como pulmão e, em diferentes grupos, participa da locomoção e dos processos alimentares.
As oito classes atuais de moluscos são bem delimitadas, porém discussões acerca da relação entre elas ainda ocorrem.
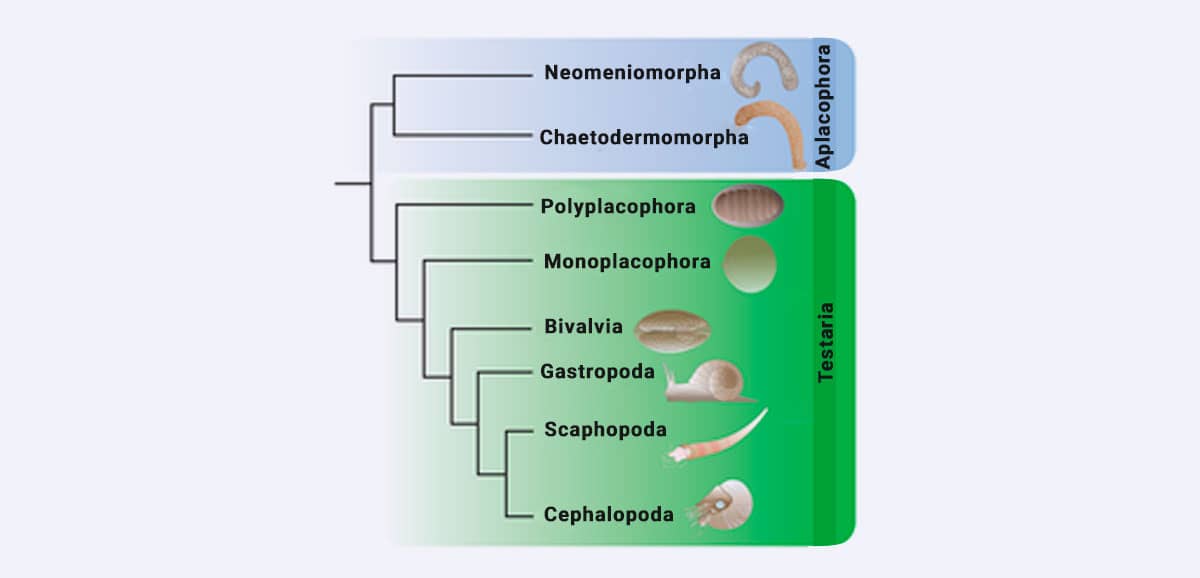
Uma das hipóteses sugere que duas linhagens surgiram dentro do filo — uma que teria levado aos grupos mais basais de aplacóforos, nos quais o pé teria perdido a função locomotora e os animais teriam movimentos vermiformes, e outra que formou o clado Testaria, com a expansão do manto ocasionando a produção de placas calcárias (nos poliplacóforos) e de conchas com perióstraco a partir da borda do manto (clado Conchifera).
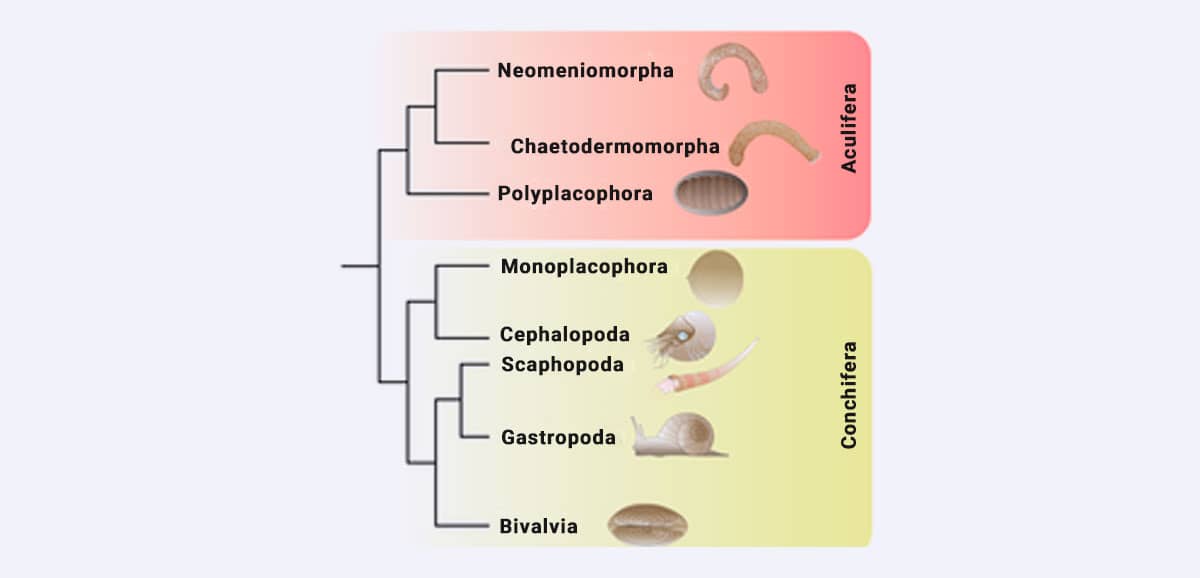
Outras hipóteses filogenéticas já apontam para um relacionamento mais estreito entre Polyplacophora e os aplacóforos (clado Aculifera), suportado pela presença de espículas calcárias nesses grupos (NIELSEN, 2012; WANNINGER; WOLLESEN, 2019). Recentemente, estudos ultraestruturais e moleculares identificaram alterações expressivas no relacionamento dentro de gastrópodes e bivalves.
A seguir, uma sinopse das classes de Mollusca, cujas características morfofuncionais, em sua maioria, já foram vistas ao longo deste módulo:
Corpo vermiforme, cutícula com escleritos calcários; com rádula e um par de ctenídeos; dioicos; bentônicos marinhos escavadores (comem microrganismos), incluem aproximadamente 120 espécies.
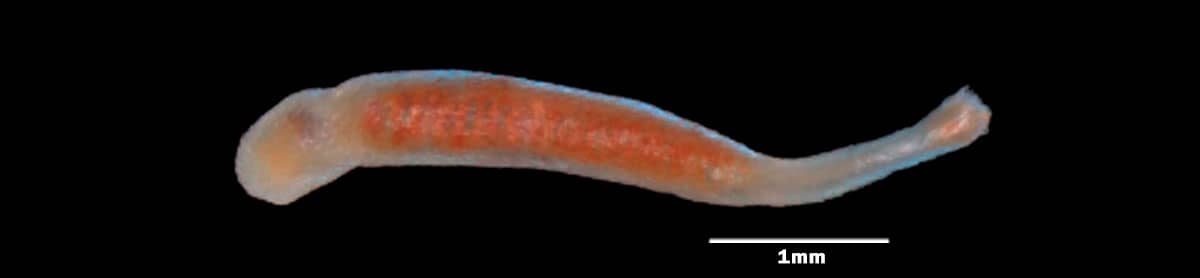
Corpo vermiforme, cutícula com espículas ou escamas calcárias; vestíbulo com papilas sensoriais; com ou sem rádula; sem ctenídios; sulco pedioso presente; hermafroditas; carnívoros epibentônicos de cnidários marinhos, incluem aproximadamente 260 espécies.
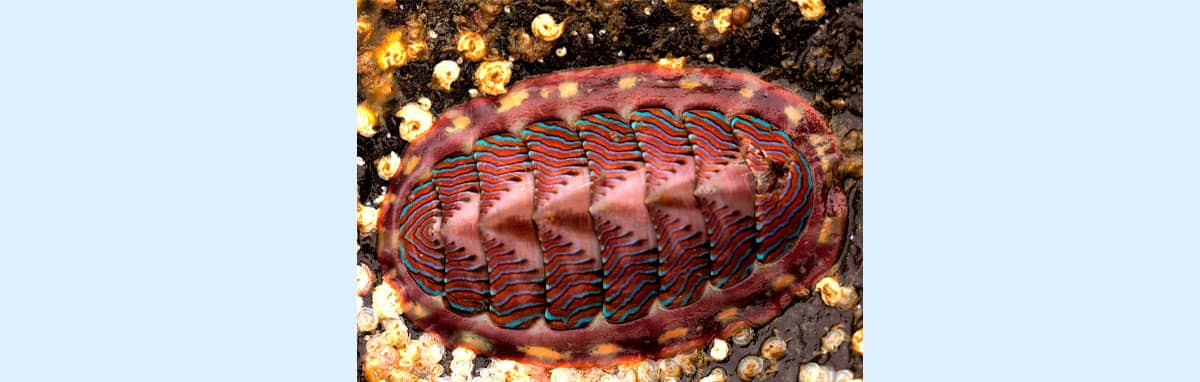
Quítons; achatados dorsoventralmente, pé ventral amplo; concha com oito placas dorsais; manto como cinturão espesso, margeando ou recobrindo totalmente as valvas, epiderme com espículas calcárias; cavidade do manto circunda o pé, de 6 a 80 ctenídeos; um par de nefrídios; rádula bem desenvolvida; marinhos de regiões entremarés até mares profundos, incluem aproximadamente 850 espécies.
Concha única em forma de capuz; pé forma disco ventral pouco muscular, circundado pela cavidade do manto; 3 a 6 pares de ctenídios; 3 a 7 pares de nefrídios; rádula e cabeça distinta; estilete cristalino presente; habitam mares profundos, incluem aproximadamente 30 espécies.
Caramujos, caracóis, lapas, lesmas e borboletas-do-mar; concha única, geralmente espiralada — perdida ou reduzida em vários grupos; pé muscular rastejador, modificado para natação ou escavação em alguns grupos; cabeça com estatocistos e olhos, um a dois pares de tentáculos; com rádula complexa e estilete cristalino; cavidade do manto abriga ctenídios (perdidos secundariamente nos grupos terrestres), osfrádios e glândula hipobranquial; marinhos, de água doce e terrestres, incluem aproximadamente 70 mil espécies distribuídas em cinco subclasses, com destaque para Heterobranchia, dividida em Opisthobranchia (lesmas marinhas e seus parentes) e Pulmonata (caracóis e lesmas terrestres), com redução de ctenídeos e hermafroditismo.
Gastrópodes realizam processo singular de torção da massa visceral em relação ao pé e à cabeça. Esse processo ocorre na fase tardia de larva véliger (sinapomorfia), na qual há a rotação inicial em 90°, geralmente em algumas horas, e depois mais 90° em novo processo mais lento, completando 180°. Com isso, a cavidade do manto passa para posição anterior, com o tubo digestivo e os cordões nervosos ficando torcidos em forma de “U” e “8” (condição estreptoneuria), respectivamente.
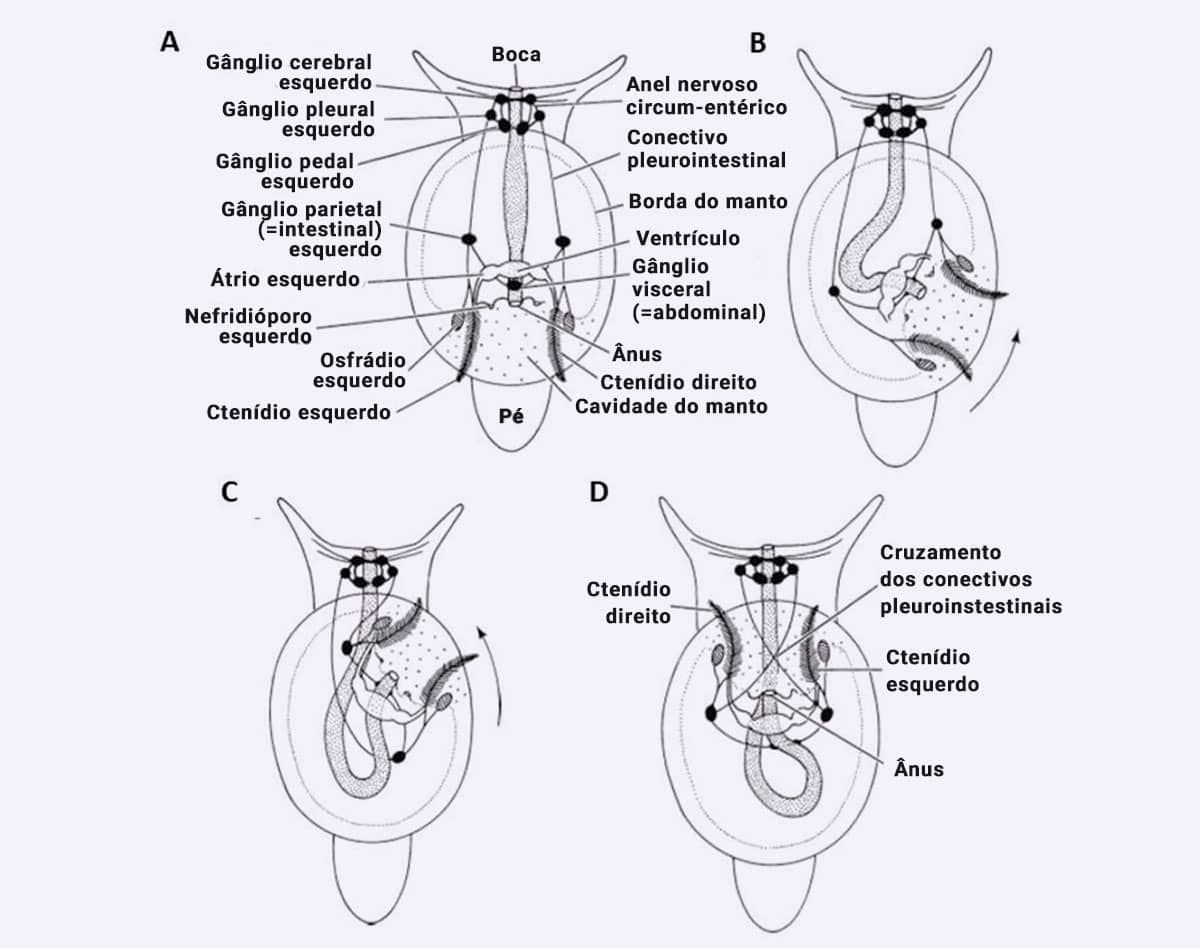
Alguns sofrem distorção total ou parcial na fase adulta (condição eutineuria), caso dos opistobrânquios. A presença da cavidade do manto em posição anterior traz benefícios, como a possibilidade de retrair a cabeça rapidamente para dentro da concha em um iminente ataque de predador. Mas ter as aberturas do ânus e dos nefrídios sobre a cabeça não seria um problema? Sem dúvida, porém, formas de minimizar esse problema de autopoluição surgiram durante a evolução do grupo — fendas e orifícios na concha, na direção do fluxo exalante da cavidade do manto, lançam a água em locais mais afastados da cabeça; longos sifões inalantes formados por dobras do manto captam água limpa de locais afastados da corrente exalante.
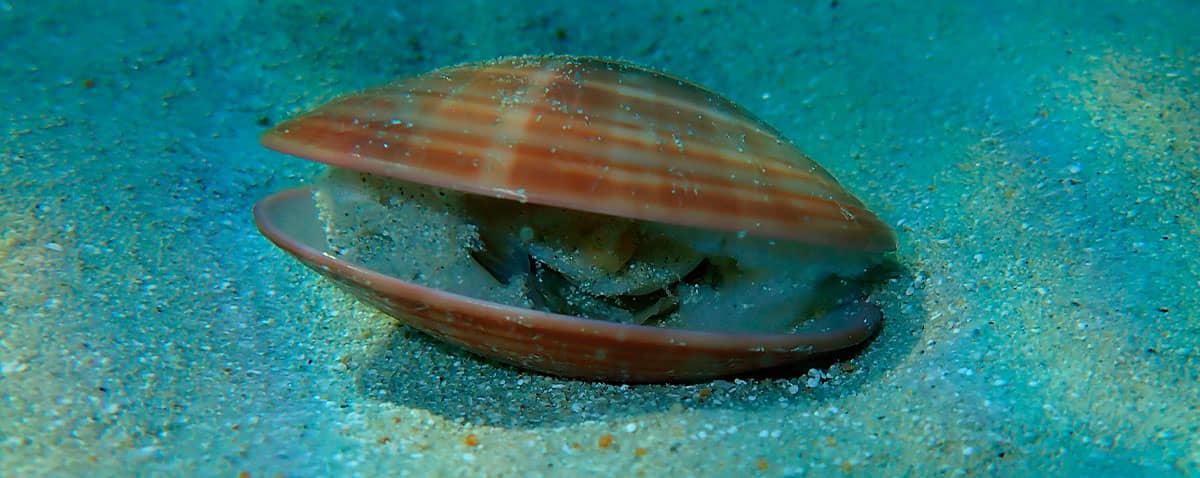
Ostras, mexilhões e vieiras; comprimidos lateralmente; concha com duas valvas articuladas dorsalmente pelo ligamento e dentes da charneira; cabeça rudimentar, sem olhos, tentáculos ou rádula, ocelos na dobra do manto; pé comprimido lateralmente; um par de ctenídios bem desenvolvidos (exceto em septibrânquios), utilizados na alimentação, na maioria das espécies; cavidade do manto ampla, com sifões inalantes e exalantes; um par de nefrídios; marinhos ou de água doce, incluem aproximadamente 9,2 mil espécies distribuídas em duas subclasses, Protobranchia (detritívoros) e Autobranchia (suspensívoros).
Concha única, tubular, afunilada, aberta em ambas as extremidades; cabeça rudimentar, com captáculos; cavidade do manto ventral; sem ctenídios, coração e olhos; com rádula, probóscide e estilete cristalino; pé cilíndrico; marinhos bentônicos, incluem aproximadamente 500 espécies.
Polvos, lulas e náutilos; concha com câmaras dispostas linearmente, externa (náutilos) ou interna e reduzida (lulas e sibas), ausente em polvos; sistema circulatório fechado; cabeça com grandes olhos complexos e círculos de braços (tentáculos) preênseis ao redor da boca; rádula e bico (mandíbulas modificadas); um a dois pares de ctenídios; um a dois pares de nefrídios complexos (rins); cavidade do manto ampla, com sifão (funil) muscular, direcional; marinhos bentônicos ou pelágicos, incluem aproximadamente 700 espécies em 3 subclasses, Palcephalopoda (náutilos e muitos fósseis), Neocephalopoda (forma fóssil) e Coleoidia (lula, polvos e sibas).
Assista a este vídeo, no qual o especialista fala sobre os problemas provocados pela introdução de certas espécies de moluscos exóticas nos ecossistemas brasileiros.
Para desbloquear o próximo módulo, é necessário que você responda corretamente a uma das seguintes questões:
Clique aqui e retorne para saber como desbloquear.
Como você viu, anelídeos e moluscos constituem dois dos principais filos de metazoários. A imensa diversidade de espécies, especialmente no caso dos moluscos, é refletida na grande variedade de formas, hábitos e ciclos de vida desses animais.
Nos anelídeos, podemos destacar como principal característica do grupo o corpo segmentado e com amplo celoma, dotado de cerdas epidérmicas pares. Já no caso dos moluscos, o celoma é reduzido a certas partes do corpo, com a hemocele sendo a principal cavidade corporal. Além disso, características singulares do filo incluem a presença do manto glandular, responsável pela secreção da concha, o pé muscular e a estrutura alimentar raspadora, a rádula. Apesar de já bem estabelecido o monofiletismo dos filos, suas relações internas ainda passam por certa instabilidade filogenética, principalmente nos anelídeos.
Antes de finalizarmos, ouça este podcast em que o especialista aborda as características que levaram o grupo dos gastrópodes a ser um dos mais importantes grupos de animais do planeta, ao longo de sua evolução.
Identificou características evolutivas comuns a Annelida e Mollusca
Distinguiu as características morfofuncionais e os padrões evolutivos do filo Annelida
Distinguiu as características morfofuncionais e os padrões evolutivos do filo Mollusca